
El ADN de las células eucariotas se encuentra organizado en una estructura nucleoproteica denominada cromatina, constituida principalmente por ácido desoxirribonucleico (ADN) asociado con proteínas histonas y no histonas, además de pequeñas cantidades de ácido ribonucleico (ARN). Esta organización permite resolver una limitación física fundamental de la célula: la longitud del material genético es considerablemente mayor que el espacio disponible dentro del núcleo. Sin embargo, el empaquetamiento del ADN no representa únicamente un mecanismo de compactación, sino también un sistema de organización estructural y regulación funcional que determina la accesibilidad de las secuencias genéticas a las proteínas responsables de la replicación, la transcripción, la reparación y la recombinación del ADN. Por esta razón, la cromatina debe entenderse como una estructura dinámica cuya configuración influye directamente en la actividad del genoma.
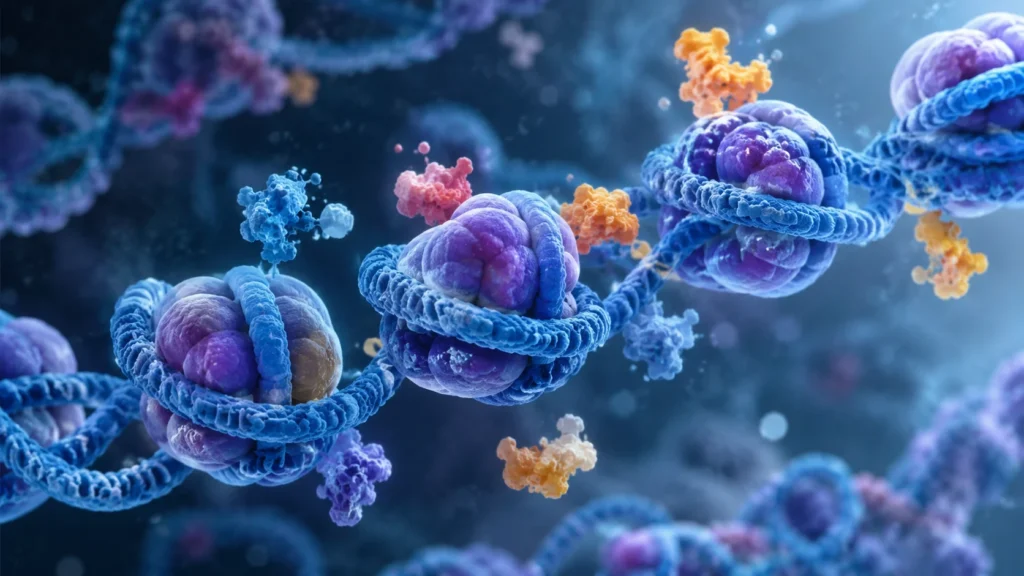
La unidad estructural fundamental de la cromatina es el nucleosoma, constituido por un segmento de ADN enrollado alrededor de un complejo proteico denominado octámero de histonas. Este complejo contiene ocho proteínas: dos copias de histona H2A, dos de H2B, dos de H3 y dos de H4. Su organización molecular se establece mediante la asociación de un tetrámero central formado por dos moléculas de H3 y dos de H4, al cual se incorporan dos dímeros H2A-H2B. La disposición de estas proteínas genera una estructura relativamente estable que funciona como soporte para el enrollamiento del ADN y permite su organización en unidades repetitivas a lo largo de los cromosomas.
Cada nucleosoma contiene aproximadamente 147 pares de bases de ADN enrollados alrededor del octámero de histonas, formando cerca de 1.65 a 1.7 vueltas de una superhélice levógira. Esta disposición no es aleatoria, ya que el ADN establece múltiples interacciones no covalentes con la superficie del octámero, principalmente mediante interacciones electrostáticas y puentes de hidrógeno. Las histonas presentan una elevada proporción de aminoácidos básicos, particularmente lisina y arginina, cuyos grupos con carga positiva favorecen su interacción con los grupos fosfato del esqueleto del ADN, que poseen carga negativa. Esta complementariedad electrostática contribuye a estabilizar el enrollamiento y reduce la repulsión entre las cargas negativas de las cadenas de ADN próximas entre sí.
La estructura del nucleosoma presenta una organización tridimensional precisa. El ADN se enrolla alrededor de la superficie del octámero y establece aproximadamente 14 regiones principales de contacto con las histonas. Estas interacciones permiten mantener el ADN compactado sin necesidad de establecer enlaces covalentes entre las moléculas. Además, la asociación entre el ADN y las histonas no es irreversible, lo que permite modificar la posición de los nucleosomas o alterar temporalmente su composición en respuesta a las necesidades funcionales de la célula. Esta característica es indispensable porque el ADN debe permanecer físicamente accesible para las proteínas que reconocen secuencias específicas y participan en los procesos de expresión y mantenimiento de la información genética.
Los nucleosomas consecutivos se encuentran separados por segmentos de ADN denominados ADN de enlace o ADN internucleosomal. Su longitud puede variar aproximadamente entre 20 y 90 pares de bases, dependiendo del organismo, el tipo celular y la región genómica considerada. La combinación del ADN enrollado alrededor de las histonas y los segmentos de enlace genera una estructura que, observada mediante microscopía electrónica en condiciones apropiadas, presenta el aspecto de un collar de cuentas. Cada cuenta corresponde a un nucleosoma y el filamento que las conecta representa el ADN de enlace. Esta configuración constituye el primer nivel de organización de la cromatina y presenta un diámetro aproximado de 10 a 11 nanómetros.
La longitud del ADN de enlace tiene consecuencias importantes sobre la organización de la cromatina porque determina la distancia entre nucleosomas y condiciona su orientación espacial. Cuando los segmentos internucleosomales son relativamente cortos, los nucleosomas pueden establecer interacciones más próximas; cuando son más largos, disponen de mayor libertad conformacional. Estas diferencias modifican la flexibilidad de las cadenas nucleosomales y repercuten en su capacidad para adoptar configuraciones compactas. Por tanto, la organización de la cromatina no depende exclusivamente del número de nucleosomas, sino también de su distribución, separación y orientación relativa.
Además de las cuatro histonas principales, participa la histona H1, denominada histona de enlace. A diferencia de las histonas que forman el octámero, esta proteína no constituye el núcleo central del nucleosoma, sino que se asocia con el ADN próximo a las regiones de entrada y salida del nucleosoma y con el ADN internucleosomal. Su unión favorece la estabilización de la trayectoria del ADN alrededor del octámero y restringe parcialmente su flexibilidad. La asociación de una histona H1 con el nucleosoma y el ADN adicional protegido por ella da lugar a una estructura denominada cromatosoma, que protege aproximadamente 160 pares de bases de ADN, en comparación con los 147 pares de bases correspondientes al núcleo nucleosomal.
La presencia de H1 también favorece las interacciones entre nucleosomas y contribuye a la compactación de las cadenas nucleosomales. Este efecto depende de la concentración de histonas de enlace, de la longitud del ADN internucleosomal y de las condiciones fisicoquímicas del medio. Los iones monovalentes y divalentes, las modificaciones químicas de las histonas y las interacciones entre sus regiones terminales también intervienen en este proceso. En consecuencia, la compactación de la cromatina resulta de la acción coordinada de diversos componentes moleculares y no de la participación aislada de una sola proteína.
A medida que aumenta el grado de organización, las cadenas de nucleosomas experimentan plegamientos y reorganizaciones que originan estructuras de orden superior. Tradicionalmente, este proceso se ha representado mediante una transición desde la fibra nucleosomal de aproximadamente 10 nanómetros hacia una fibra compactada de aproximadamente 30 nanómetros. Esta última se ha relacionado con arreglos helicoidales o en zigzag, en los cuales los nucleosomas establecen contactos entre sí y el ADN de enlace adquiere una disposición espacial más restringida. La histona H1 contribuye a estabilizar estas configuraciones mediante la organización de los segmentos de ADN que entran y salen de cada nucleosoma. Sin embargo, es importante precisar que la fibra uniforme de 30 nanómetros no constituye una estructura universalmente demostrada en los núcleos de las células vivas. Las investigaciones mediante técnicas de microscopía y análisis estructural indican que la cromatina presenta organizaciones heterogéneas, dinámicas y dependientes del contexto celular.
La compactación de la cromatina permite distinguir dos estados estructurales y funcionales generales: eucromatina y heterocromatina. La eucromatina corresponde a regiones relativamente menos compactadas, en las cuales el ADN presenta mayor accesibilidad para los factores de transcripción, las ARN polimerasas y otras proteínas reguladoras. Por esta razón, suele asociarse con regiones genómicas que contienen genes transcripcionalmente activos o potencialmente activos. En contraste, la heterocromatina presenta una organización más compacta y generalmente se relaciona con una menor accesibilidad del ADN y una reducción de la actividad transcripcional. No obstante, estos estados no son absolutamente rígidos, puesto que determinadas regiones pueden modificar su grado de compactación y actividad dependiendo del tipo celular, las señales ambientales y el programa de diferenciación.
La heterocromatina puede clasificarse, de manera general, en constitutiva y facultativa. La heterocromatina constitutiva mantiene un estado de compactación relativamente estable y se encuentra frecuentemente en regiones repetitivas del genoma, como determinados segmentos centroméricos y teloméricos. Su función comprende la protección de la estabilidad cromosómica, el mantenimiento de la organización de regiones repetitivas y la prevención de la activación inadecuada de elementos genéticos potencialmente perjudiciales. Por otra parte, la heterocromatina facultativa corresponde a regiones cuyo estado de compactación puede modificarse durante el desarrollo o en respuesta a mecanismos de regulación celular. Esta característica permite silenciar determinados genes en unos tipos celulares y mantenerlos disponibles para su expresión en otros, contribuyendo al establecimiento y mantenimiento de la identidad celular.
La organización de los nucleosomas también está regulada por modificaciones químicas que ocurren principalmente en las regiones terminales de las histonas, conocidas como colas histónicas. Estas regiones sobresalen de la estructura nucleosomal y pueden experimentar modificaciones postraduccionales, entre las que destacan la acetilación, la metilación, la fosforilación y la ubiquitinación. Dichas modificaciones alteran las propiedades fisicoquímicas de las histonas o generan sitios de reconocimiento para proteínas reguladoras específicas. Por consiguiente, pueden modificar las interacciones entre nucleosomas, favorecer la compactación o facilitar el acceso de la maquinaria transcripcional al ADN.
La acetilación de las histonas constituye uno de los mecanismos más importantes relacionados con la regulación de la accesibilidad de la cromatina. Esta modificación consiste en la incorporación de un grupo acetilo a determinados residuos de lisina de las histonas, mediante la actividad de enzimas denominadas acetiltransferasas de histonas. Debido a que la lisina posee normalmente una carga positiva, su acetilación neutraliza dicha carga y modifica las interacciones electrostáticas entre las histonas y el ADN. Como consecuencia, puede disminuir la estabilidad de determinadas interacciones nucleosomales y favorecer una configuración de cromatina más accesible. Por el contrario, las desacetilasas de histonas eliminan los grupos acetilo y pueden favorecer estados de compactación y represión transcripcional. Sin embargo, estos efectos dependen del contexto molecular y de las proteínas que reconocen las modificaciones, por lo que la acetilación no debe interpretarse como un mecanismo que activa automáticamente todos los genes asociados.
La metilación de las histonas presenta una regulación más dependiente del sitio de modificación. Puede ocurrir en residuos específicos de lisina y arginina, y su efecto depende de la posición y del número de grupos metilo incorporados. Por ejemplo, la trimetilación de la lisina 4 de la histona H3, denominada H3K4me3, se encuentra frecuentemente asociada con regiones promotoras de genes activos, mientras que la trimetilación de la lisina 27 de la histona H3, denominada H3K27me3, se relaciona con la represión transcripcional mediada por complejos represores. Asimismo, la trimetilación de la lisina 9 de la histona H3, denominada H3K9me3, participa en el establecimiento y mantenimiento de determinadas regiones heterocromáticas. Estos ejemplos demuestran que las modificaciones histónicas funcionan como señales moleculares cuya interpretación depende de su localización y de las proteínas que interactúan con ellas.
Otro mecanismo fundamental corresponde a la remodelación de la cromatina dependiente de energía. Este proceso es realizado por complejos proteicos que utilizan la energía de la hidrólisis del trifosfato de adenosina (ATP) para modificar la posición, composición o estabilidad de los nucleosomas. Algunos complejos desplazan los nucleosomas a lo largo del ADN, otros facilitan su eliminación y otros participan en la incorporación de variantes histónicas. Estas actividades permiten exponer secuencias específicas de ADN que previamente se encontraban cubiertas por las histonas, o bien ocultarlas cuando es necesario limitar su accesibilidad. Por tanto, la remodelación nucleosomal constituye un mecanismo esencial para regular la expresión génica y coordinar los procesos de replicación, reparación y mantenimiento del genoma.
La organización de la cromatina tampoco termina en el plegamiento de las cadenas nucleosomales, ya que estas estructuras participan en la formación de dominios tridimensionales dentro del núcleo. La cromatina presenta regiones que establecen contactos preferenciales entre sí y otras que permanecen espacialmente diferenciadas. Entre estas organizaciones se encuentran los compartimentos nucleares asociados con estados de actividad transcripcional, los dominios de asociación topológica y los bucles de cromatina. Su formación depende de múltiples interacciones entre proteínas estructurales, complejos de cohesina, CTCF, nucleosomas y otros componentes reguladores. Estas configuraciones permiten aproximar regiones genómicas que se encuentran separadas en la secuencia lineal del ADN, facilitando, por ejemplo, la interacción entre potenciadores de la transcripción y promotores génicos.
En consecuencia, la organización del ADN en nucleosomas y cromatina constituye un sistema jerárquico y dinámico que integra la compactación física del material genético con la regulación de sus funciones biológicas. Los nucleosomas representan las unidades básicas de empaquetamiento; el ADN de enlace y las histonas H1 contribuyen a organizar las cadenas nucleosomales; las modificaciones postraduccionales y los complejos remodeladores regulan sus propiedades estructurales y funcionales; y las interacciones tridimensionales permiten organizar regiones genómicas en dominios con características específicas. La importancia de esta organización radica en que el genoma no puede funcionar únicamente por contener información genética: también necesita mecanismos que determinen cuándo, dónde y en qué condiciones dicha información puede ser utilizada. Por ello, la estructura de la cromatina constituye uno de los principales niveles de regulación de la expresión génica, la diferenciación celular y la estabilidad del material hereditario.

FUENTE Y BIBLIOGRAFÍA RECOMENDADA:
1. Luger, K., Mäder, A. W., Richmond, R. K., Sargent, D. F., & Richmond, T. J. (1997). Crystal structure of the nucleosome core particle at 2.8 Å resolution. Nature, 389, 251–260. https://doi.org/10.1038/38444
2. Szerlong, H. J., & Hansen, J. C. (2011). Nucleosome distribution and linker DNA: Connecting nuclear function to dynamic chromatin structure. Biochemistry and Cell Biology, 89(1), 24–34. https://doi.org/10.1139/O10-139
3. McGinty, R. K., & Tan, S. (2015). Nucleosome structure and function. Chemical Reviews, 115(6), 2255–2273. https://doi.org/10.1021/cr500373h
4. Li, W., Chen, P., Yu, J., Dong, L., Liang, D., Feng, J., Yan, J., Wang, P. Y., Li, Q., Zhang, Z., Li, M., & Li, G. (2015). Structure and organization of chromatin fiber in the nucleus. FEBS Letters, 589(20 Pt A), 2893–2904. https://doi.org/10.1016/j.febslet.2015.04.023
5. Aljahani, A., Mauksch, C., & Oudelaar, A. M. (2024). The relationship between nucleosome positioning and higher-order genome folding. Current Opinion in Cell Biology, 89, 102398. https://doi.org/10.1016/j.ceb.2024.102398
6. Zhou, B. R., Feng, H., Ghirlando, R., Kato, H., Gruschus, J., & Bai, Y. (2016). The nucleosome-binding mode of the linker histone H5. Molecular Cell, 62(1), 91–104. https://doi.org/10.1016/j.molcel.2016.03.014
7. Bednar, J., Horowitz, R. A., Grigoryev, S. A., Carruthers, L. M., Hansen, J. C., Koster, A. J., & Woodcock, C. L. (1998). Nucleosomes, linker DNA, and linker histone form a unique structural motif that directs the higher-order folding and compaction of chromatin. Proceedings of the National Academy of Sciences, 95(24), 14173–14178. https://doi.org/10.1073/pnas.95.24.14173
8. Ou, H. D., Phan, S., Deerinck, T. J., Thor, A., Ellisman, M. H., & O’Shea, C. C. (2017). ChromEMT: Visualizing 3D chromatin structure and compaction in interphase and mitotic cells. Science, 357(6349), eaag0025. https://doi.org/10.1126/science.aag0025
9. Liu, S., Athreya, A., Lao, Z., & Zhang, B. (2024). From nucleosomes to compartments: Physicochemical interactions underlying chromatin organization. Annual Review of Biophysics, 53, 221–245. https://doi.org/10.1146/annurev-biophys-030822-032650
10. Bannister, A. J., & Kouzarides, T. (2011). Regulation of chromatin by histone modifications. Cell Research, 21, 381–395. https://doi.org/10.1038/cr.2011.22
11. Saksouk, N., Simboeck, E., & Déjardin, J. (2015). Constitutive heterochromatin formation and transcription in mammals. Epigenetics & Chromatin, 8, 3. https://doi.org/10.1186/1756-8935-8-3
12. Kouzarides, T. (2007). Chromatin modifications and their function. Cell, 128(4), 693–705. https://doi.org/10.1016/j.cell.2007.02.005
13. Clapier, C. R., Iwasa, J., Cairns, B. R., & Peterson, C. L. (2017). Mechanisms of action and regulation of ATP-dependent chromatin-remodelling complexes. Nature Reviews Molecular Cell Biology, 18, 407–422. https://doi.org/10.1038/nrm.2017.26
14. Bonev, B., & Cavalli, G. (2016). Organization and function of the 3D genome. Nature Reviews Genetics, 17, 661–678. https://doi.org/10.1038/nrg.2016.112
15. Rowley, M. J., & Corces, V. G. (2018). Organizational principles of 3D genome architecture. Nature Reviews Genetics, 19, 789–800. https://doi.org/10.1038/s41576-018-0060-8