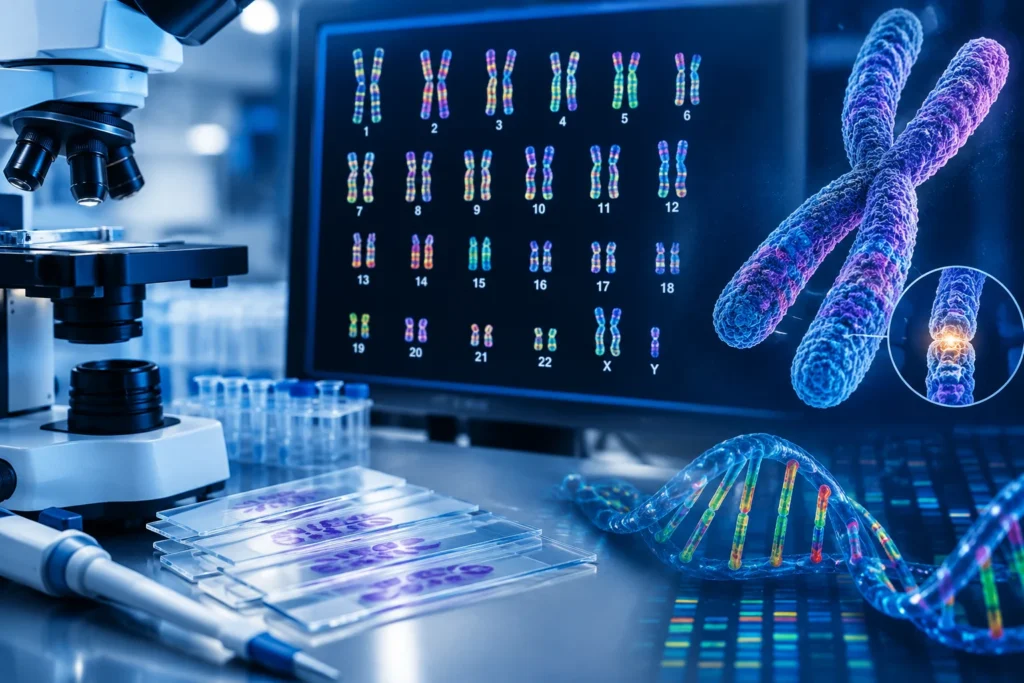

En las células somáticas humanas que presentan un complemento cromosómico habitual existen 46 cromosomas, organizados en 23 pares: 22 pares de autosomas y un par de cromosomas sexuales. Estos 46 cromosomas pertenecen a 24 tipos diferentes porque los autosomas se distribuyen en 22 clases, numeradas del 1 al 22, y los cromosomas sexuales comprenden dos tipos adicionales, denominados X y Y. Por consiguiente, una célula somática masculina con un complemento cromosómico 46,XY contiene los 24 tipos, mientras que una célula somática femenina con un complemento 46,XX contiene 23 tipos de identidad cromosómica, aunque posee 46 cromosomas individuales. Esta distinción entre número de cromosomas e identidad cromosómica es fundamental para interpretar correctamente un cariotipo humano y comprender por qué la diversidad de tipos no equivale al número de copias presentes en una célula.
La identificación citológica de cada tipo cromosómico se fundamenta en la combinación de características morfológicas y moleculares que permiten distinguirlo de los demás. La longitud del cromosoma proporciona un primer criterio de clasificación, mientras que la posición del centrómero determina la proporción relativa de sus brazos. A estas características se añade el patrón de bandas producido por técnicas de tinción diferencial y, con métodos moleculares, la composición y distribución de secuencias específicas de ácido desoxirribonucleico. La utilidad de combinar estos criterios radica en que ninguna característica morfológica aislada permite identificar inequívocamente todos los cromosomas humanos: varios pueden presentar dimensiones y formas semejantes, pero sus patrones de bandas y sus secuencias permiten diferenciarlos. El desarrollo de técnicas de bandeo cromosómico y de métodos de hibridación molecular ha incrementado considerablemente la capacidad de identificar cromosomas y detectar alteraciones estructurales que no pueden reconocerse únicamente mediante la observación de su forma general.
La longitud global representa una característica cuantificable que ayuda a ordenar e identificar los cromosomas durante el análisis citogenético. En los cariotipos convencionales, los autosomas se numeran, en términos generales, de mayor a menor longitud, aunque existe una excepción histórica importante: el cromosoma 21 se sitúa antes que el cromosoma 22, pese a que es más pequeño. La longitud observada depende del grado de condensación de la cromatina, del momento del ciclo celular en que se examina la célula y de las condiciones de preparación de la muestra. Por esta razón, las dimensiones citológicas no deben interpretarse como una medida absoluta e invariable del contenido de ácido desoxirribonucleico. La longitud permite establecer una primera aproximación a la identidad cromosómica, pero requiere complementarse con la morfología y el patrón de bandas para lograr una identificación fiable.
La posición del centrómero constituye un segundo criterio esencial porque determina la organización de los brazos cromosómicos. El centrómero es una región especializada del cromosoma en la que se ensambla el cinetocoro, una estructura proteica necesaria para establecer la conexión con los microtúbulos del huso celular y facilitar la distribución correcta de los cromosomas durante la división celular. En función de su posición relativa, los cromosomas humanos se clasifican morfológicamente en metacéntricos, submetacéntricos y acrocéntricos. Los metacéntricos presentan un centrómero aproximadamente central y dos brazos de longitud semejante; los submetacéntricos poseen un centrómero desplazado del centro, por lo que sus brazos son desiguales; y los acrocéntricos presentan un centrómero próximo a uno de los extremos, de modo que su brazo corto es considerablemente menor que el largo. Esta clasificación permite reducir la complejidad del análisis inicial, aunque no identifica por sí sola cada cromosoma, puesto que varios integrantes de una misma categoría comparten una morfología semejante.
En la nomenclatura citogenética, el brazo corto se denomina p y el brazo largo se denomina q. Estas designaciones permiten describir de manera estandarizada la localización de regiones cromosómicas, genes y alteraciones estructurales. Los cromosomas humanos acrocéntricos son los números 13, 14, 15, 21 y 22; sus brazos cortos pueden contener regiones organizadoras del nucléolo, asociadas con secuencias de ácido desoxirribonucleico ribosómico, así como regiones de ADN repetitivo y estructuras satélite. Estas características aportan información adicional para distinguirlos y comprender su organización molecular. Sin embargo, la presencia y el tamaño aparente de los satélites pueden variar, por lo que no constituyen un rasgo visual absolutamente constante en todas las preparaciones citológicas.
La tercera característica, el contenido de secuencia, permite explicar por qué dos cromosomas de dimensiones similares y con una posición centromérica comparable pueden seguir siendo entidades diferentes. Cada tipo cromosómico contiene una organización característica de genes, secuencias reguladoras, regiones no codificantes, elementos repetitivos y otras regiones de ADN. El genoma humano no está compuesto exclusivamente por genes codificantes: una proporción considerable corresponde a secuencias no codificantes y repetitivas que también contribuyen a la estructura, la regulación y la evolución del genoma. En consecuencia, la identidad de un cromosoma no depende únicamente de su apariencia física, sino también de la distribución de secuencias que lo constituye. Esta diferencia molecular puede investigarse mediante técnicas como la hibridación fluorescente in situ, que emplea sondas complementarias a regiones específicas del ADN, y mediante la secuenciación genómica, que permite caracterizar la composición y el orden de las bases nitrogenadas.
El patrón de bandas cromosómicas constituye el vínculo práctico entre la morfología y la composición molecular. En el bandeo convencional con tinción de Giemsa después de un tratamiento apropiado, cada cromosoma presenta una distribución característica de bandas claras y oscuras. Estas diferencias de tinción se relacionan con propiedades de la cromatina, entre ellas su composición, organización y estado de condensación. El patrón de bandas permite identificar regiones específicas a lo largo de los brazos cromosómicos y establecer un sistema de referencia para describir deleciones, duplicaciones, inversiones y translocaciones. De este modo, el análisis citogenético no se limita a contar cromosomas: permite evaluar si su estructura general y la disposición de sus regiones son compatibles con un complemento cromosómico habitual. La resolución de esta evaluación depende de la técnica empleada y del grado de condensación de los cromosomas, por lo que las alteraciones pequeñas pueden requerir métodos moleculares complementarios.
La relación entre longitud, centrómero y contenido de secuencia debe interpretarse, por tanto, como una combinación de criterios complementarios. La longitud ayuda a ordenar los cromosomas; la posición centromérica permite describir su morfología; y el patrón de bandas, junto con las técnicas moleculares, proporciona información para reconocer su identidad y caracterizar su composición. La aplicación conjunta de estos criterios explica cómo pueden diferenciarse 24 tipos cromosómicos humanos a pesar de que las células somáticas habitualmente contienen 46 cromosomas organizados en pares. También permite comprender que las variaciones de tamaño, las diferencias en regiones repetitivas y las reorganizaciones estructurales no siempre pueden interpretarse correctamente a partir de la apariencia general del cromosoma. La identificación fiable requiere integrar la observación citológica con la evidencia molecular disponible, especialmente cuando se investigan alteraciones cromosómicas de posible relevancia clínica.

FUENTE Y BIBLIOGRAFÍA RECOMENDADA:
- Barra, V., & Fachinetti, D. (2018). The dark side of centromeres: Types, causes and consequences of structural abnormalities implicating centromeric DNA. Nature Communications, 9, Article 4340. https://doi.org/10.1038/s41467-018-06545-y
- McGowan-Jordan, J., Simons, A., & Schmid, M. (Eds.). (2016). ISCN 2016: An international system for human cytogenomic nomenclature. Karger. https://www.ncbi.nlm.nih.gov/nlmcatalog/101678834
- Pires, S., Jorge, P., Liehr, T., et al. (2024). Challenges in classifying human chromosomal heteromorphisms using banding cytogenetics: From controversial guidelines to the need for a universal scoring system. Human Genome Variation, 11, Article 38. https://doi.org/10.1038/s41439-024-00295-8
- Trask, B. J. (2002). Human cytogenetics: 46 chromosomes, 46 years and counting. Nature Reviews Genetics, 3, 769–778. https://doi.org/10.1038/nrg905
- Genomic and functional variation of human centromeres. (2020). Genes. https://pmc.ncbi.nlm.nih.gov/articles/PMC7140587/