
La observación de los cromosomas condensados durante la metafase y la prometafase de la división celular resulta especialmente útil para el análisis citogenético porque, durante estas etapas, el material genético alcanza un grado elevado de compactación y adquiere una organización morfológica que permite distinguir los cromosomas individuales, evaluar su estructura y estudiar posibles alteraciones numéricas o estructurales. Esta característica depende de la reorganización progresiva de la cromatina, de la actividad de complejos proteicos que regulan su arquitectura y de los mecanismos que mantienen asociadas las dos copias de cada cromosoma después de la replicación del ácido desoxirribonucleico. La condensación no implica que el material genético se encuentre inactivo de manera absoluta, sino que responde a una reorganización estructural necesaria para distribuirlo de manera ordenada y reducir el riesgo de entrelazamientos y roturas durante la segregación cromosómica.
La utilidad de estas etapas para el estudio de los cromosomas se explica, por tanto, mediante la interacción de tres procesos fundamentales: la condensación de la cromatina, el mantenimiento de la cohesión entre las cromátidas hermanas y la preparación de los cromosomas para su distribución entre las células hijas. Estos procesos permiten comprender tanto la apariencia de los cromosomas en una extensión cromosómica como la dificultad que puede existir para distinguir visualmente sus cromátidas individuales.
La división celular mitótica comprende una secuencia ordenada de cambios en la organización del material genético. Durante la interfase, el ácido desoxirribonucleico se encuentra distribuido en forma de cromatina dentro del núcleo, con una organización que permite procesos como la replicación del genoma y la regulación de la expresión génica. Aunque la cromatina ya posee distintos niveles de compactación, los cromosomas individuales no suelen presentar los contornos definidos que caracterizan a los cromosomas mitóticos. Al comenzar la mitosis, la cromatina experimenta una reorganización progresiva que da lugar a estructuras cromosómicas individualizadas y mucho más compactas. Esta transformación depende, principalmente, de los complejos condensina I y condensina II, que participan en el plegamiento de la cromatina, la formación de bucles de ácido desoxirribonucleico y la organización longitudinal de los cromosomas.
Durante la prometafase, los cromosomas se encuentran suficientemente condensados para distinguirse mediante microscopía óptica. En esta etapa se desorganiza la envoltura nuclear, lo que permite que los microtúbulos del huso mitótico accedan a los cromosomas e interactúen con ellos mediante los cinetocoros, estructuras proteicas especializadas localizadas en la región centromérica. Los cromosomas continúan experimentando movimientos y cambios de orientación mientras establecen las conexiones necesarias para su distribución. Por consiguiente, la prometafase ofrece una oportunidad para observar cromosomas individualizados, aunque su disposición todavía puede ser irregular y la geometría de cada cromosoma puede cambiar durante la preparación de la muestra.
La metafase representa otra etapa especialmente favorable para el análisis citogenético porque los cromosomas han alcanzado un estado avanzado de condensación y se alinean, en condiciones normales, en la región ecuatorial de la célula. En este momento, los cromosomas presentan una morfología relativamente estable y permiten examinar características como su longitud relativa, la posición del centrómero, la relación entre los brazos cromosómicos y la presencia de determinadas alteraciones estructurales. La alineación metafásica también facilita la evaluación del número de cromosomas, siempre que la preparación permita identificar y contar adecuadamente cada estructura individual.
Es importante precisar que la metafase no es necesariamente superior a la prometafase para todos los tipos de análisis. El grado de condensación influye en la cantidad de detalles morfológicos que pueden resolverse: una condensación elevada facilita la identificación de los cromosomas como unidades separadas, pero puede dificultar el examen de regiones pequeñas o de bandas cromosómicas muy próximas. Las preparaciones prometafásicas, cuando presentan cromosomas menos condensados, pueden ofrecer una mayor resolución de determinados patrones de bandas y facilitar la identificación de alteraciones estructurales pequeñas. Por tanto, la elección de la etapa depende del objetivo citogenético y del nivel de resolución requerido.
Para comprender la estructura observada durante la mitosis, es necesario considerar lo que sucede antes de que esta comience. Durante la fase de síntesis de la interfase, el ácido desoxirribonucleico se replica y cada cromosoma genera dos copias del material genético que, en condiciones normales, son prácticamente idénticas. Estas copias reciben el nombre de cromátidas hermanas. Cada cromátida contiene una molécula de ácido desoxirribonucleico de doble cadena asociada con proteínas y organizada en cromatina; durante la mitosis, esta cromatina se compacta hasta formar una unidad cromosómica visible.
Las cromátidas hermanas no deben confundirse con los cromosomas homólogos. Las primeras proceden de la replicación de un mismo cromosoma y, por ello, contienen secuencias genéticas esencialmente equivalentes, salvo las posibles diferencias producidas por errores de replicación o acontecimientos de reparación. Los cromosomas homólogos, en cambio, constituyen los dos miembros de un par, uno heredado de cada progenitor en una célula somática humana diploide. Aunque contienen los mismos tipos de genes en posiciones correspondientes, pueden presentar variantes alélicas diferentes. En consecuencia, un cromosoma duplicado durante la metafase mitótica se compone de dos cromátidas hermanas, mientras que sus cromosomas homólogos constituyen otra unidad cromosómica distinta.
La duplicación del material genético no produce inmediatamente dos cromosomas independientes a efectos del recuento citogenético. Mientras las cromátidas hermanas permanecen asociadas, el conjunto se considera un único cromosoma duplicado. Esta distinción es fundamental porque el número de cromosomas se determina convencionalmente contando las unidades cromosómicas según sus centrómeros, no contando por separado cada molécula de ácido desoxirribonucleico ni cada cromátida. Así, una célula somática humana típica en metafase posee 46 cromosomas duplicados, constituidos por 92 cromátidas. Cada cromosoma contiene dos cromátidas hermanas, pero continúa contabilizándose como una unidad cromosómica hasta que estas se separan durante la anafase.
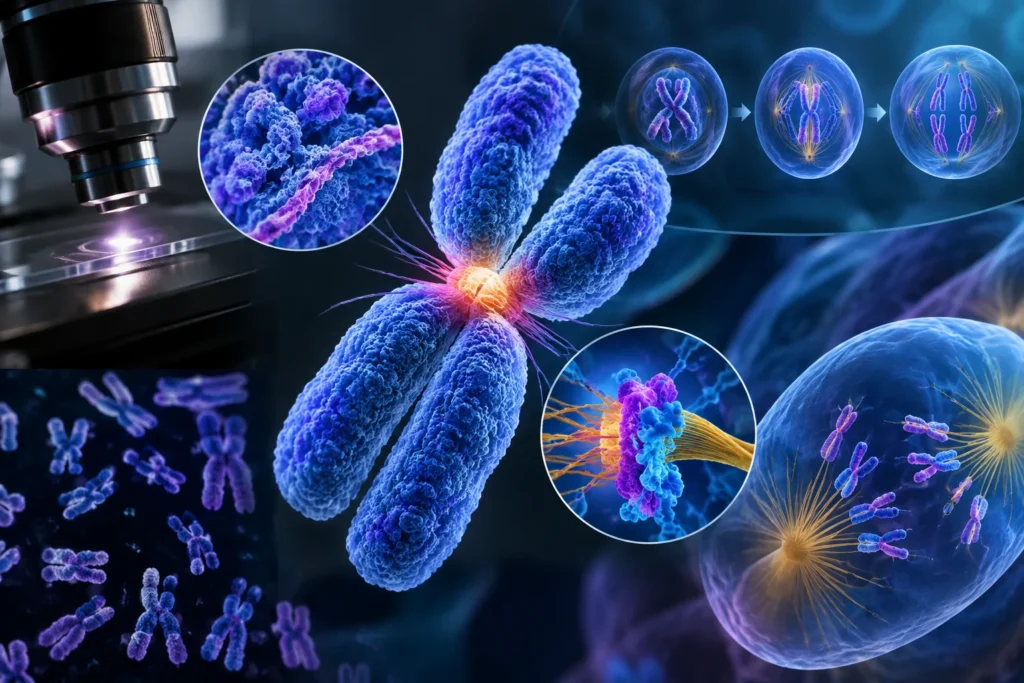
El centrómero es una región especializada del cromosoma que cumple una función esencial en la segregación del material genético. En esta región se organiza el cinetocoro, un complejo de proteínas que establece la conexión funcional entre el cromosoma y los microtúbulos del huso mitótico. Esta interacción permite orientar los cromosomas y generar las fuerzas necesarias para separar las cromátidas hermanas durante la anafase. La posición del centrómero también constituye un criterio morfológico utilizado para clasificar los cromosomas humanos en función de la longitud relativa de sus brazos.
Sin embargo, afirmar que las cromátidas hermanas permanecen unidas exclusivamente por el centrómero sería una simplificación. La cohesión entre las cromátidas depende principalmente del complejo proteico cohesina, que contribuye a mantener asociadas las copias del cromosoma después de la replicación. Aunque la cohesión tiene una importancia especial en las regiones centroméricas durante la mitosis, también intervienen mecanismos de organización y resolución de las cromátidas a lo largo de sus brazos. La cohesina permite mantener una asociación controlada hasta el momento apropiado para la segregación, evitando que las copias se distribuyan prematuramente entre polos opuestos de la célula.
La cohesión no es el único factor que determina la proximidad física entre las cromátidas. Durante la replicación, las moléculas de ácido desoxirribonucleico recién sintetizadas pueden quedar topológicamente entrelazadas. La topoisomerasa II participa en la resolución de estos entrelazamientos mediante el corte transitorio de ambas cadenas de una molécula de ácido desoxirribonucleico, el paso de otro segmento de ácido desoxirribonucleico a través de la abertura y la posterior restitución de la continuidad de la molécula cortada. Este mecanismo facilita la individualización de las cromátidas y contribuye a evitar que permanezcan conectadas cuando deben desplazarse hacia polos opuestos durante la división celular.
Por consiguiente, la asociación entre las cromátidas hermanas responde a una combinación de cohesión proteica, organización de la cromatina y resolución progresiva de los entrelazamientos del ácido desoxirribonucleico. Estos mecanismos deben coordinarse con precisión: una separación prematura comprometería la distribución del material genético, mientras que una resolución incompleta podría provocar puentes de cromatina, roturas del ácido desoxirribonucleico o errores de segregación. La arquitectura cromosómica observada en metafase es, por tanto, el resultado de un equilibrio dinámico entre la compactación, la asociación de las cromátidas y su preparación para separarse.
La dificultad para observar las dos cromátidas hermanas como estructuras independientes se debe, fundamentalmente, a que la duplicación del material genético no va acompañada de una separación física completa e inmediata. Después de la replicación, las cromátidas permanecen asociadas mediante la cohesina y otros mecanismos de interacción que contribuyen a mantener su proximidad. Al mismo tiempo, cada cromátida experimenta una condensación intensa, de modo que ambas adquieren una organización compacta y se disponen longitudinalmente una junto a la otra. La combinación de estos procesos produce un cromosoma duplicado cuyo contorno externo puede observarse con claridad, aunque los límites entre las dos cromátidas no siempre resultan evidentes mediante microscopía óptica convencional.
La condensación cromosómica contribuye a esta dificultad porque reduce considerablemente el volumen ocupado por la cromatina y reorganiza su distribución espacial. Los complejos condensina participan en la formación y estabilización de bucles de ácido desoxirribonucleico y en la organización de los ejes cromosómicos. Este proceso no consiste simplemente en enrollar dos filamentos independientes para formar una estructura uniforme, sino que implica una reorganización tridimensional compleja de cada cromátida y de sus interacciones con la cromátida hermana. En consecuencia, la imagen observada al microscopio representa una proyección de una estructura tridimensional compacta, por lo que la proximidad de ambas cromátidas y la superposición parcial de sus perfiles pueden dificultar su identificación individual.
Además, la cohesión entre las cromátidas no se distribuye necesariamente de manera uniforme a lo largo de todo el cromosoma. Las regiones próximas al centrómero mantienen una cohesión especialmente importante para asegurar la correcta orientación de las cromátidas hacia polos opuestos del huso mitótico. En los brazos cromosómicos, la asociación experimenta una reorganización progresiva durante la mitosis. Esta distribución contribuye a explicar por qué, en algunos cromosomas, las cromátidas parecen individualizarse parcialmente en los brazos mientras permanecen estrechamente asociadas en la región centromérica. Sin embargo, la apariencia concreta depende de la morfología cromosómica, del grado de condensación y de las condiciones de preparación de la muestra.
También debe distinguirse entre la resolución óptica del microscopio y la separación biológica de las cromátidas. Que dos cromátidas no puedan identificarse visualmente como entidades independientes no significa que carezcan de una organización molecular diferenciada. Cada una contiene su propia molécula de ácido desoxirribonucleico de doble cadena, y los mecanismos de condensación y cohesión regulan tanto su individualización como su asociación funcional. Por tanto, la ausencia de un límite visual nítido entre ambas es una limitación de la observación morfológica, no una demostración de que el cromosoma esté constituido por una única molécula de ácido desoxirribonucleico.
La apariencia de los cromosomas no depende exclusivamente de los procesos que ocurren dentro de la célula. También está condicionada por las técnicas utilizadas para obtener la extensión cromosómica. En los procedimientos citogenéticos convencionales, las células se cultivan y se detienen en una etapa apropiada de la mitosis; posteriormente, se someten a un tratamiento hipotónico, se fijan y se extienden sobre un portaobjetos. El tratamiento hipotónico favorece el aumento del volumen celular y facilita la dispersión de los cromosomas, mientras que la fijación preserva una parte de su organización morfológica para permitir su tinción y examen microscópico. Estos procedimientos modifican la organización nativa de la célula, por lo que la imagen obtenida debe interpretarse como una preparación experimental y no como una representación completamente inalterada del cromosoma dentro de una célula viva.
La calidad de la extensión influye directamente en la identificación de las cromátidas hermanas. Cuando los cromosomas quedan superpuestos, demasiado próximos o parcialmente deformados, resulta más difícil reconocer sus límites. Por el contrario, una dispersión adecuada permite estudiar la morfología individual de cada cromosoma y reduce la confusión entre cromosomas distintos. La tinción y las técnicas de bandeo también son relevantes, ya que generan patrones reproducibles de regiones cromosómicas que permiten identificar cada cromosoma y reconocer determinadas alteraciones estructurales. La resolución alcanzada depende de la calidad de la preparación, del grado de condensación y del procedimiento de tinción empleado.
En este contexto, la observación de las cromátidas hermanas requiere considerar tanto la estructura biológica del cromosoma como las limitaciones técnicas del procedimiento. La metafase suele proporcionar extensiones útiles para el recuento y la identificación cromosómica, mientras que las preparaciones de prometafase o de etapas mitóticas más tempranas pueden revelar patrones de bandas más detallados debido a una condensación menos avanzada. Esta diferencia resulta especialmente importante cuando el objetivo consiste en identificar alteraciones pequeñas que podrían pasar inadvertidas en cromosomas más compactos.
La asociación estrecha entre las cromátidas hermanas no constituye una limitación funcional, sino una condición necesaria para la distribución correcta del genoma. Durante la metafase, las cromátidas deben permanecer asociadas mientras sus cinetocoros establecen conexiones con los microtúbulos procedentes de polos opuestos del huso mitótico. Esta disposición permite generar tensión y establecer las condiciones necesarias para que el sistema de control de la división celular compruebe que los cromosomas están correctamente unidos antes de iniciar la separación. La cohesión contribuye, por tanto, a la orientación adecuada de los cromosomas y a la fidelidad de la segregación genética.
La separación se inicia cuando se activa la separasa, una proteasa que escinde una subunidad esencial de la cohesina. Esta modificación permite eliminar la cohesión que mantiene asociadas las cromátidas hermanas y posibilita que cada una se desplace hacia un polo opuesto de la célula. La transición de metafase a anafase representa así un cambio funcional decisivo: el cromosoma duplicado deja de comportarse como una unidad formada por dos cromátidas asociadas, y cada cromátida pasa a constituir un cromosoma independiente. Este mecanismo garantiza que, en condiciones normales, las células hijas reciban una copia de cada cromosoma del complemento celular.
Si la cohesión se pierde antes de tiempo, si los cromosomas no se conectan correctamente al huso o si persisten entrelazamientos entre las moléculas de ácido desoxirribonucleico, aumenta el riesgo de errores de segregación. Entre las consecuencias posibles se encuentran la distribución desigual de los cromosomas, la formación de células con un número cromosómico anormal y la aparición de lesiones o reordenamientos del genoma. La organización compacta y la cohesión de las cromátidas deben entenderse, por tanto, como componentes coordinados de un sistema que protege la integridad genética durante la división celular.
Los cromosomas humanos pueden analizarse con especial facilidad durante la prometafase y la metafase porque la cromatina alcanza un grado elevado de condensación, los cromosomas se individualizan y su morfología permite evaluar el número, la forma, la posición del centrómero y los patrones de bandas. Cada cromosoma duplicado está constituido por dos cromátidas hermanas originadas durante la replicación del ácido desoxirribonucleico. Ambas permanecen asociadas principalmente mediante la cohesina, cuya distribución y regulación permiten mantenerlas unidas hasta el momento adecuado de la división celular.
La dificultad para distinguir visualmente las dos cromátidas se explica por su proximidad física, la compactación de la cromatina, la complejidad tridimensional de los ejes cromosómicos y las características de la preparación microscópica. Por ello, la ausencia de una separación ópticamente evidente no significa que las cromátidas no existan como unidades moleculares diferenciadas. Su asociación es una propiedad funcional necesaria para asegurar que, al producirse la anafase, el material genético se distribuya de forma ordenada y precisa entre las células hijas.

FUENTE Y BIBLIOGRAFÍA RECOMENDADA:
1. Oliveira, R. A., Coelho, P. A., & Sunkel, C. E. (2017). A topology-centric view on mitotic chromosome architecture. International Journal of Molecular Sciences, 18(12), Article 2751. https://doi.org/10.3390/ijms18122751
2. Hirano, T. (2012). Condensins: Universal organizers of chromosomes with diverse functions. Genes & Development, 26(16), 1659–1678. https://doi.org/10.1101/gad.194746.112
3. McIntosh, J. R. (2016). Mitosis. Cold Spring Harbor Perspectives in Biology, 8(9), Article a023218. https://doi.org/10.1101/cshperspect.a023218
4. Yunis, J. J., Sawyer, J. R., & Ball, D. W. (1978). The characterization of high-resolution G-banded chromosomes of man. Chromosoma, 67(4), 293–307. https://doi.org/10.1007/BF00285963
5. Rønne, M. (1990). Chromosome preparation and high resolution banding (review). In Vivo, 4(6), 337–365. https://pubmed.ncbi.nlm.nih.gov/2103374/
6. Nasmyth, K. (2002). Segregating sister genomes: The molecular biology of chromosome separation. Science, 297(5581), 559–565. https://doi.org/10.1126/science.1074757
7. Meluh, P. B., & Strunnikov, A. V. (2002). Beyond the ABCs of CKC and SCC. Do centromeres orchestrate sister chromatid cohesion or vice versa? European Journal of Biochemistry, 269(9), 2300–2314. https://doi.org/10.1046/j.1432-1033.2002.02886.x
8. Porter, A. C. G., & Farr, C. J. (2004). Topoisomerase II: Untangling its contribution at the centromere. Chromosome Research, 12, 569–583.
9. Samejima, K., Ogawa, H., Ageichik, A. V., Peterson, K. L., Kaufmann, A., & Earnshaw, W. C. (2018). Mitotic chromosomes. Cold Spring Harbor Perspectives in Biology, 10(9), Article a029595. https://doi.org/10.1101/cshperspect.a029595
10. Nasmyth, K., Peters, J. M., & Uhlmann, F. (2000). Splitting the chromosome: Cutting the ties that bind sister chromatids. Science, 288(5470), 1379–1385. https://doi.org/10.1126/science.288.5470.1379