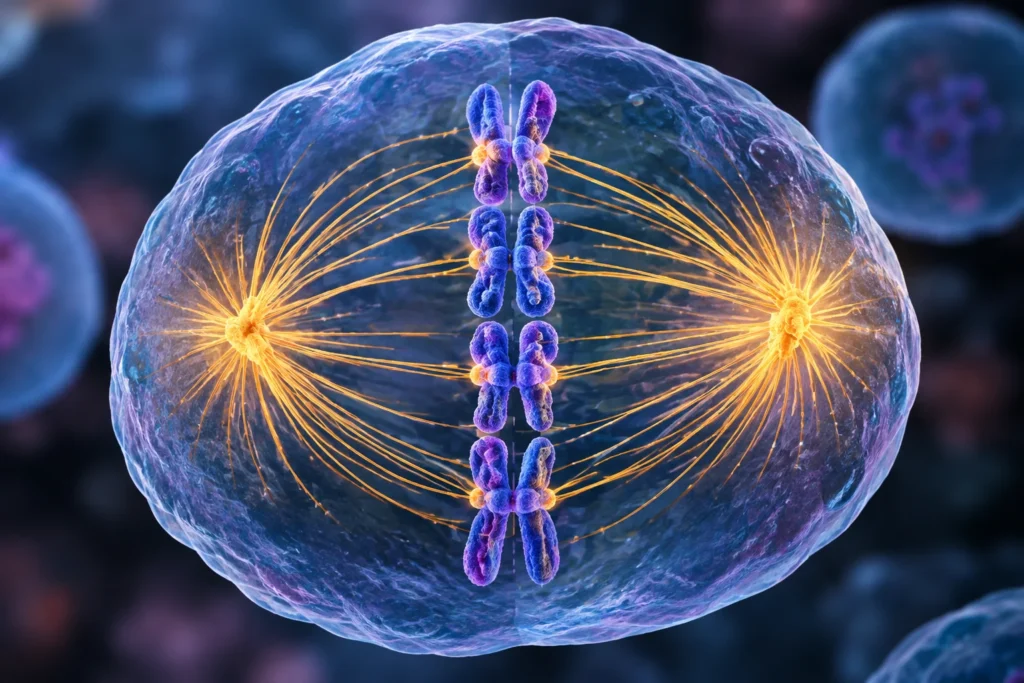

La metafase es una etapa de la división celular en la que los cromosomas duplicados, previamente condensados durante la profase y organizados por el huso mitótico durante la prometafase, alcanzan una disposición espacial que favorece la distribución precisa del material genético entre las células hijas. Durante este periodo, los cromosomas se encuentran alineados en la región central de la célula, denominada placa metafásica o plano ecuatorial, y sus cromátidas hermanas permanecen unidas mientras sus cinetocoros establecen conexiones funcionales con los microtúbulos procedentes de polos opuestos del huso mitótico. Esta organización no es simplemente una característica morfológica, sino el resultado de un proceso dinámico de reconocimiento, unión, movimiento y regulación molecular que permite comprobar que cada cromosoma se encuentre correctamente preparado para separar sus cromátidas durante la anafase.
La condensación cromosómica es un proceso que comienza antes de la metafase y continúa hasta que los cromosomas adquieren una configuración compacta adecuada para su segregación. Durante la interfase, el ácido desoxirribonucleico se encuentra organizado como cromatina dentro del núcleo, asociada con histonas y otras proteínas que regulan su empaquetamiento, accesibilidad y actividad funcional. Sin embargo, antes de que una célula pueda distribuir de manera ordenada sus cromosomas duplicados, debe reorganizar esta estructura para transformar el material genético en unidades físicas compactas y distinguibles. La condensación reduce la extensión espacial de los cromosomas y contribuye a controlar su organización mecánica, lo que facilita su manipulación por el huso mitótico y disminuye la probabilidad de que se produzcan entrelazamientos, deformaciones o dificultades durante la separación de las cromátidas hermanas. Por este motivo, la condensación constituye una condición estructural importante para la segregación cromosómica, aunque no es suficiente por sí sola para garantizar que esta ocurra correctamente.
La organización de los cromosomas condensados depende, entre otros factores, de los complejos proteicos denominados condensinas y de la actividad de la topoisomerasa II. Las condensinas participan en la formación y organización de la estructura cromosómica mitótica mediante la reorganización de la cromatina, mientras que la topoisomerasa II contribuye a resolver determinados entrelazamientos topológicos entre moléculas de ácido desoxirribonucleico. Estas actividades son relevantes porque la duplicación del material genético produce dos moléculas de ácido desoxirribonucleico que deben mantenerse organizadas y posteriormente separarse sin generar conexiones físicas persistentes. La compactación y la organización interna de los cromosomas permiten, por tanto, que cada unidad genética pueda desplazarse como una estructura relativamente definida durante la división celular. No obstante, la condensación no debe interpretarse como un simple plegamiento uniforme: implica una arquitectura molecular organizada y dinámica cuya configuración depende de múltiples proteínas y propiedades físicas de la cromatina.
La afirmación de que los cromosomas alcanzan su máxima condensación durante la metafase es una descripción clásica de la mitosis, particularmente útil para explicar su aspecto bajo el microscopio óptico. En esta etapa, los cromosomas suelen presentar una morfología compacta y claramente reconocible, lo que facilita observarlos, contarlos y estudiar su estructura. Sin embargo, debe entenderse como una generalización descriptiva: la compactación cromosómica se establece progresivamente durante la mitosis y su organización molecular no queda definida exclusivamente por el grado de condensación visible. La forma, las dimensiones y el grado de compactación observados pueden variar según el organismo, el tipo celular y las condiciones experimentales. En consecuencia, la característica esencial de la metafase no es únicamente que los cromosomas se vean muy condensados, sino que se encuentren organizados en una configuración que permita verificar sus conexiones con el huso y preparar su separación ordenada.
La alineación en el plano ecuatorial se produce mediante la interacción entre los cromosomas y el huso mitótico, una estructura formada principalmente por microtúbulos constituidos por tubulina y por proteínas asociadas que regulan su crecimiento, acortamiento y capacidad de generar fuerzas. Durante la prometafase, los microtúbulos establecen contacto con los cinetocoros, complejos proteicos localizados en la región centromérica de cada cromátida hermana. Estos cinetocoros funcionan como puntos de unión entre los cromosomas y la maquinaria de segregación, de manera que permiten transmitir las fuerzas mecánicas necesarias para modificar la posición y orientación de cada cromosoma dentro de la célula. La búsqueda de estas conexiones y su estabilización dependen del comportamiento dinámico de los microtúbulos, que pueden crecer, acortarse y establecer nuevas interacciones hasta conseguir una configuración apropiada.
La disposición característica de la metafase requiere que los cinetocoros de las dos cromátidas hermanas establezcan conexiones con microtúbulos asociados a polos opuestos del huso mitótico. Esta configuración se denomina biorientación. Su importancia radica en que las fuerzas ejercidas desde direcciones contrarias generan tensión mecánica sobre la región centromérica y favorecen la estabilización de las uniones correctas entre los cinetocoros y los microtúbulos. Cuando las conexiones son incorrectas, por ejemplo, si ambos cinetocoros se unen a microtúbulos procedentes del mismo polo, la configuración puede corregirse mediante mecanismos que desestabilizan determinadas uniones y permiten establecer otras nuevas. La biorientación, por consiguiente, no constituye una consecuencia automática de la condensación cromosómica, sino una organización mecánica que debe alcanzarse y mantenerse mediante procesos regulados.
El movimiento de los cromosomas hacia el ecuador celular, denominado congresión cromosómica, depende de la acción coordinada de los microtúbulos, las proteínas motoras y las propiedades dinámicas de los cinetocoros. Estas estructuras no permanecen inmóviles durante la metafase: los microtúbulos pueden experimentar ciclos de polimerización y despolimerización, mientras que las proteínas asociadas a los cromosomas contribuyen a regular la posición de estos y las fuerzas que actúan sobre ellos. La posición ecuatorial surge de la interacción de fuerzas procedentes de ambos polos, de la dinámica de las conexiones cromosómicas y de los mecanismos de corrección de los errores de unión. Por ello, la placa metafásica no debe imaginarse como una estructura física que atrae y sostiene pasivamente a los cromosomas, sino como una región espacial en la que estos alcanzan una disposición relativamente estable mediante interacciones mecánicas y moleculares continuas.
Una vez que los cromosomas se encuentran alineados, la célula debe comprobar que sus conexiones con el huso mitótico sean compatibles con una segregación correcta. Esta función corresponde, en gran medida, al punto de control del ensamblaje del huso, un sistema de vigilancia molecular que retrasa el inicio de la anafase cuando existen cinetocoros que no se encuentran correctamente unidos a los microtúbulos. Los cinetocoros que carecen de uniones adecuadas pueden generar señales inhibitorias que mantienen bloqueada la actividad del complejo promotor de la anafase o ciclosoma, una ligasa de ubiquitina que regula la degradación de proteínas esenciales para la progresión mitótica. Entre sus principales objetivos se encuentran la securina y la ciclina B. La degradación de la securina permite activar la separasa, una proteasa que favorece la eliminación de la cohesión entre las cromátidas hermanas, mientras que la degradación de la ciclina B contribuye a reducir la actividad de la quinasa dependiente de ciclina 1 y a facilitar la salida de la mitosis. De este modo, el punto de control evita que la separación cromosómica se inicie antes de que las condiciones de unión al huso sean adecuadas.
La relación entre alineación y control molecular es fundamental porque la distribución desigual de los cromosomas puede provocar que las células hijas reciban cantidades incorrectas de material genético. Cuando se producen errores de segregación que no son corregidos, pueden originarse células aneuploides, es decir, células que presentan un número de cromosomas diferente del esperado. La aneuploidía puede alterar la expresión génica, modificar el equilibrio de las proteínas celulares y comprometer la viabilidad o la función de las células. En determinados contextos, la inestabilidad cromosómica también puede contribuir a la evolución de los tumores. Por esta razón, la metafase representa un periodo esencial para la fidelidad de la división celular: la condensación facilita la organización física de los cromosomas, la biorientación permite establecer conexiones mecánicas apropiadas y los mecanismos de vigilancia regulan el momento en que puede comenzar la separación de las cromátidas hermanas.
La metafase se caracteriza por la presencia de cromosomas altamente condensados y alineados en la región ecuatorial, pero su importancia biológica reside en la coordinación de tres condiciones complementarias: una organización estructural que permita manejar el material genético duplicado, una conexión biorientada con el huso mitótico que haga posible su separación hacia polos opuestos y un sistema de control que retrase la anafase cuando las uniones cromosómicas todavía no sean adecuadas. La culminación coordinada de estos procesos prepara a la célula para distribuir sus cromátidas hermanas de forma ordenada y conservar, en condiciones normales, la información genética que recibirán las células hijas.

FUENTE Y BIBLIOGRAFÍA RECOMENDADA:
- McIntosh, J. R. (2016). Mitosis. Cold Spring Harbor Perspectives in Biology, 8(9), a023218. https://doi.org/10.1101/cshperspect.a023218
- Koshland, D., & Strunnikov, A. (1996). Mitotic chromosome condensation. Annual Review of Cell and Developmental Biology, 12, 305–333. https://doi.org/10.1146/annurev.cellbio.12.1.305
- Liu, S.-T., & Zhang, H. (2016). The mitotic checkpoint complex (MCC): Looking back and forth after 15 years. AIMS Molecular Science, 3(4), 597–634. https://doi.org/10.3934/molsci.2016.4.597
- Rhind, N., & Russell, P. (2012). Signaling pathways that regulate cell division. Cold Spring Harbor Perspectives in Biology, 4(10), a005942. https://doi.org/10.1101/cshperspect.a005942
- Silva, P., Barbosa, J., Nascimento, A. V., Faria, J., Reis, R., & Bousbaa, H. (2011). Monitoring the fidelity of mitotic chromosome segregation by the spindle assembly checkpoint. Cell Proliferation, 44(5), 391–400. https://doi.org/10.1111/j.1365-2184.2011.00767.x
- Gonzalez, P. S., & Pines, J. (2021). Spindle assembly checkpoint activation and silencing at kinetochores. Seminars in Cell & Developmental Biology, 117, 86–98. https://doi.org/10.1016/j.semcdb.2021.06.009