
La prometafase constituye una etapa de la mitosis en la que se reorganiza la arquitectura celular para permitir que los cromosomas duplicados establezcan conexiones funcionales con el huso mitótico. Su acontecimiento inicial más característico es la desintegración de la envoltura nuclear, proceso que permite que los microtúbulos del huso accedan físicamente a los cromosomas y establezcan interacciones con sus cinetocoros. Esta transición no consiste únicamente en la desaparición de una barrera física, sino que implica la coordinación de mecanismos moleculares responsables de capturar los cromosomas, corregir conexiones defectuosas y preparar la distribución equitativa del material genético entre las dos células hijas. La correcta ejecución de estos procesos es indispensable para mantener la estabilidad del genoma y evitar errores de segregación cromosómica.
La envoltura nuclear está formada por membranas y estructuras proteicas que separan el contenido del núcleo del citoplasma durante la mayor parte del ciclo celular. Al comenzar la prometafase, esta envoltura se desorganiza como consecuencia de los cambios moleculares asociados con la entrada en mitosis, entre los que destaca la fosforilación de proteínas que participan en la organización de las membranas nucleares, los poros nucleares y la lámina nuclear. La desorganización de estas estructuras elimina la separación espacial entre los cromosomas y los microtúbulos citoplasmáticos del huso mitótico, haciendo posible su interacción directa. Por tanto, la ruptura de la envoltura nuclear constituye un requisito estructural para el mecanismo de captura cromosómica característico de la mitosis abierta, presente en las células animales y en numerosas especies eucariotas.
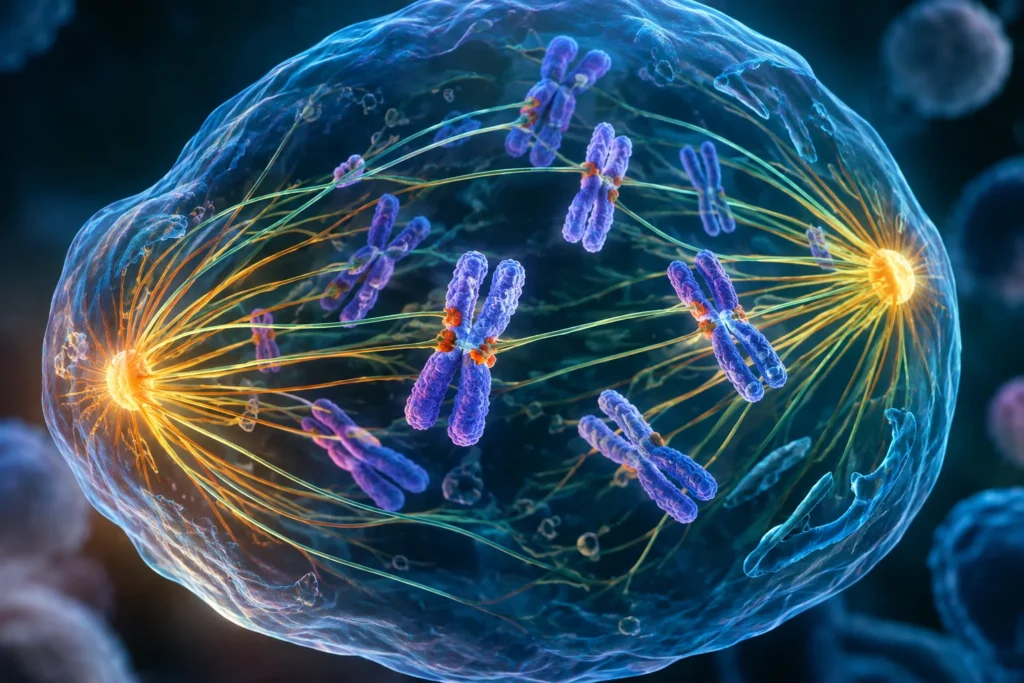
Una vez que los cromosomas quedan expuestos al citoplasma, pueden establecer conexiones con los microtúbulos del huso mitótico. Estos son polímeros dinámicos constituidos por dímeros de tubulina alfa y beta, capaces de crecer y acortarse mediante la incorporación y pérdida de subunidades. Su organización espacial permite generar una estructura bipolar, cuyos extremos se orientan hacia regiones opuestas de la célula. Los microtúbulos exploran el espacio celular mediante su dinámica de ensamblaje y desensamblaje, lo que incrementa la probabilidad de encontrar los cromosomas y capturar sus cinetocoros. Este proceso no ocurre de manera perfectamente ordenada desde el principio: las conexiones iniciales pueden ser transitorias o incorrectas, por lo que deben estabilizarse o corregirse antes de que se produzca la separación de las cromátidas hermanas.
Los cinetocoros son complejos multiproteicos que se ensamblan sobre regiones especializadas de los cromosomas denominadas centrómeros. Su función consiste en conectar el material cromosómico con los microtúbulos del huso y transformar las interacciones moleculares en fuerzas mecánicas que permiten mover y orientar los cromosomas. Entre las proteínas que intervienen en esta conexión destaca el complejo NDC80, que contribuye directamente a la unión entre el cinetocoro y los microtúbulos. Como cada cromosoma duplicado posee dos cromátidas hermanas, sus cinetocoros deben establecer, en condiciones normales, conexiones con microtúbulos procedentes de polos opuestos del huso. Esta disposición, denominada biorientación, permite generar fuerzas opuestas y favorece que las cromátidas hermanas puedan separarse correctamente durante la anafase.
La captura de los cromosomas no garantiza por sí misma una segregación correcta, porque pueden establecerse uniones inadecuadas entre los cinetocoros y los microtúbulos. Algunas conexiones no generan la tensión apropiada, mientras que otras pueden orientar ambas cromátidas hacia el mismo polo o conectar un cinetocoro con microtúbulos procedentes de ambos polos. Para reducir estos errores, la célula dispone de mecanismos de corrección que modifican la estabilidad de las uniones defectuosas y favorecen el establecimiento de conexiones adecuadas. La prometafase es, por tanto, un período de reorganización y comprobación activa, durante el cual la captura de los cromosomas, la corrección de las uniones y el desplazamiento cromosómico ocurren de manera coordinada.
Además, los cinetocoros desempeñan una función esencial en el control del avance del ciclo celular mediante el punto de control del ensamblaje del huso mitótico. Este sistema de vigilancia detecta la presencia de cinetocoros que todavía no se han unido correctamente a los microtúbulos y genera una señal inhibitoria que impide el inicio prematuro de la anafase. La señal mantiene inhibido el complejo promotor de la anafase o ciclosoma, una maquinaria molecular que, cuando se activa, favorece la degradación de proteínas necesarias para mantener unidas las cromátidas hermanas. De este modo, la célula dispone del tiempo necesario para completar las conexiones entre los cromosomas y el huso antes de distribuir el material genético. Cuando las uniones son adecuadas y la señal de vigilancia se silencia, puede activarse la maquinaria que desencadena la separación cromosómica.
Durante la prometafase, los cromosomas experimentan movimientos progresivos hasta aproximarse al plano ecuatorial de la célula, donde se organizarán para formar la placa metafásica. Este desplazamiento, denominado congresión cromosómica, depende de la actividad coordinada de los microtúbulos, las proteínas motoras y las fuerzas que actúan sobre los cromosomas. No todos los cromosomas siguen exactamente la misma trayectoria: algunos establecen conexiones con microtúbulos de manera relativamente directa, mientras que otros requieren mecanismos de transporte lateral para alcanzar la región ecuatorial. La prometafase concluye funcionalmente cuando todos los cromosomas han establecido conexiones apropiadas y alcanzan una disposición que permite su posterior segregación. Por consiguiente, la desintegración de la envoltura nuclear, la captura de los cinetocoros, la corrección de las conexiones y la activación del sistema de vigilancia son procesos complementarios que hacen posible una división celular genéticamente fiable.

FUENTE Y BIBLIOGRAFÍA RECOMENDADA:
- Ferreira, L. T., & Maiato, H. (2021). Prometaphase. Seminars in Cell & Developmental Biology, 117, 52–61. https://doi.org/10.1016/j.semcdb.2021.06.004
- Foley, E. A., & Kapoor, T. M. (2013). Microtubule attachment and spindle assembly checkpoint signalling at the kinetochore. Nature Reviews Molecular Cell Biology, 14, 25–37. https://doi.org/10.1038/nrm3494
- Lara-Gonzalez, P., Pines, J., & Desai, A. (2021). Spindle assembly checkpoint activation and silencing at kinetochores. Seminars in Cell & Developmental Biology, 117, 86–98. https://doi.org/10.1016/j.semcdb.2021.06.009
- McAinsh, A. D., & Kops, G. J. P. L. (2023). Principles and dynamics of spindle assembly checkpoint signalling. Nature Reviews Molecular Cell Biology, 24(8), 543–559. https://doi.org/10.1038/s41580-023-00593-z
- Prosser, S. L., & Pelletier, L. (2017). Mechanisms of chromosome congression during mitosis. The Journal of Cell Biology, 216(5), 1171–1188. https://doi.org/10.1083/jcb.201610066