
El huso mitótico es una estructura macromolecular dinámica, organizada principalmente a partir de microtúbulos y proteínas asociadas, que permite distribuir los cromosomas duplicados entre las dos células hijas durante la mitosis. Su función esencial consiste en garantizar que cada célula hija reciba una dotación cromosómica apropiada, conservando, en condiciones normales, la información genética de la célula progenitora. La formación del huso requiere la coordinación de la polimerización y despolimerización de los microtúbulos, la actividad de proteínas motoras, la organización de los centros de nucleación y el establecimiento de conexiones mecánicamente estables entre los microtúbulos y los cromosomas.
La importancia del huso mitótico no se limita a desplazar los cromosomas de una región celular a otra. Se trata de un sistema de organización espacial y generación de fuerzas que debe identificar los cromosomas, establecer conexiones con ellos, corregir uniones incorrectas, alinear los cromosomas en el centro de la célula y separar las cromátidas hermanas en el momento adecuado. Estos procesos deben ocurrir de manera coordinada, porque una conexión defectuosa entre los microtúbulos y los cromosomas puede provocar una distribución desigual del material genético.
El huso mitótico constituye un ejemplo de autoorganización celular: sus componentes individuales interactúan mediante reglas bioquímicas y mecánicas que permiten construir una estructura bipolar funcional. La forma final del huso no depende exclusivamente de un molde rígido preexistente, sino de la nucleación de microtúbulos, sus propiedades dinámicas, las interacciones entre filamentos y la actividad coordinada de numerosas proteínas. Aunque se conocen muchos de estos componentes y mecanismos, todavía existen aspectos de la autoorganización y la robustez del huso que no se comprenden por completo.
Estructura y organización del huso mitótico
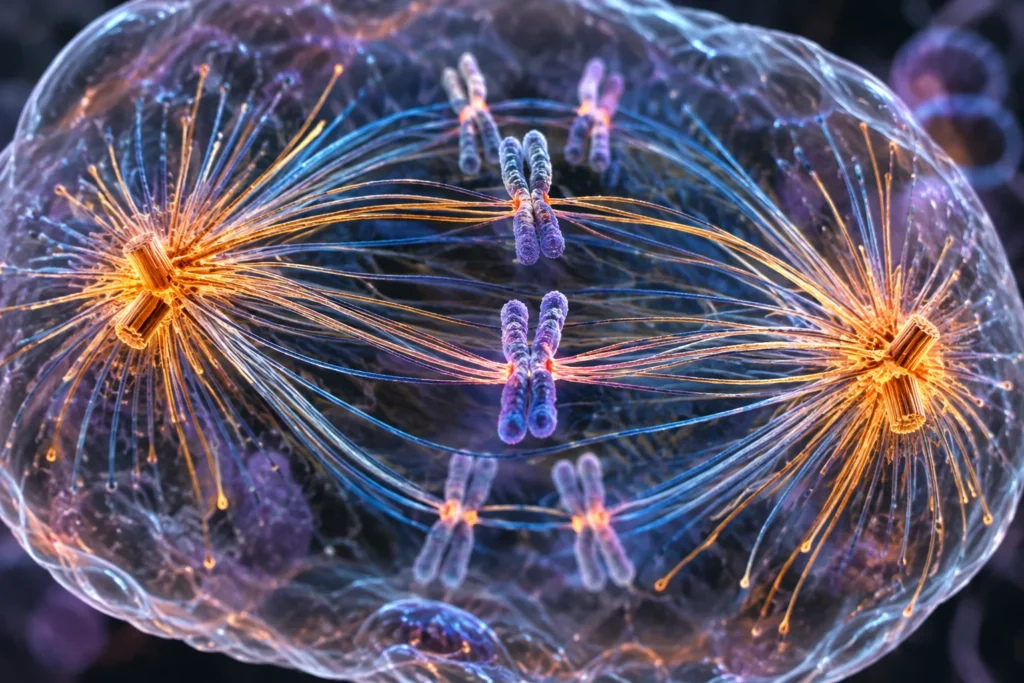
En las células animales, el huso mitótico suele presentar una forma aproximadamente fusiforme, con dos regiones polares opuestas y una zona central donde se alinean los cromosomas durante la metafase. Entre ambos polos se distribuye una red tridimensional de microtúbulos que interactúa con los cromosomas y con otros componentes del citoplasma. Esta geometría bipolar es fundamental porque permite que las cromátidas hermanas de cada cromosoma se conecten con regiones opuestas del huso y, posteriormente, sean desplazadas hacia polos contrarios.
La arquitectura del huso puede comprenderse mediante la distinción entre sus componentes estructurales principales.
Polos del huso y centrosomas
En muchas células animales, los centrosomas actúan como centros organizadores de microtúbulos. Cada centrosoma contiene un par de centríolos rodeados por material pericentriolar, donde se concentran proteínas que favorecen la nucleación y organización de los microtúbulos. Antes de la mitosis, el centrosoma se duplica, de modo que la célula dispone de dos centros organizadores que pueden separarse y contribuir a establecer los dos polos del huso.
La duplicación del centrosoma y la separación de los polos deben coordinarse con el ciclo celular. Si los polos no se organizan correctamente, el huso puede presentar una geometría anormal que dificulte la captura de los cromosomas o altere la orientación de las fuerzas que actúan sobre ellos. Por tanto, la formación de dos polos funcionales es un requisito arquitectónico importante para la segregación cromosómica, aunque la organización del huso no depende exclusivamente de los centrosomas.
Es importante precisar que no todas las células eucariotas organizan el huso mediante centrosomas con centríolos. Existen células que carecen de centrosomas convencionales y que forman sus husos mediante mecanismos alternativos de nucleación, agrupamiento y organización de microtúbulos. En consecuencia, los centrosomas representan una vía importante de organización, especialmente en células animales, pero no constituyen un requisito universal para la formación del huso mitótico.
Microtúbulos: el armazón dinámico
Los microtúbulos son polímeros cilíndricos formados por heterodímeros de α-tubulina y β-tubulina. Estos dímeros se incorporan a los extremos del polímero y forman una estructura polarizada, con un extremo positivo y otro negativo. La polaridad es importante porque las proteínas motoras reconocen la orientación de los microtúbulos y generan movimientos dirigidos, mientras que la dinámica de sus extremos permite modificar continuamente la longitud de los filamentos.
Los microtúbulos no constituyen varillas rígidas e inmutables. Alternan entre fases de crecimiento y acortamiento, fenómeno conocido como inestabilidad dinámica. La transición relativamente rápida de un estado de crecimiento a uno de acortamiento se denomina catástrofe, mientras que el paso de acortamiento a crecimiento se denomina rescate. Estas transiciones permiten que el huso explore el espacio celular, establezca conexiones con los cromosomas y reorganice su arquitectura a medida que avanza la mitosis.
La dinámica de los microtúbulos depende, entre otros factores, de la incorporación de tubulina unida a guanosín trifosfato y de los cambios conformacionales asociados con su hidrólisis. La pérdida de estabilidad del extremo del microtúbulo favorece el acortamiento, mientras que la incorporación de nuevos dímeros puede mantener o restablecer el crecimiento. Esta dinámica resulta esencial porque el huso debe ser suficientemente estable para transmitir fuerzas, pero también suficientemente flexible para corregir conexiones y reorganizarse.
Microtúbulos cinetocóricos
Los microtúbulos cinetocóricos son aquellos que se conectan con los cinetocoros, complejos proteicos ensamblados sobre regiones específicas del cromosoma asociadas con el centrómero. Esta conexión constituye el vínculo mecánico directo entre el aparato del huso y los cromosomas. A través de ella, las fuerzas generadas por el crecimiento, el acortamiento y la actividad de las proteínas motoras pueden modificar la posición de los cromosomas y contribuir a separar las cromátidas hermanas.
En un huso bipolar correctamente organizado, los cinetocoros de las dos cromátidas hermanas establecen conexiones con polos opuestos. Esta configuración, denominada unión anfitélica, permite generar tensión a través de las cromátidas hermanas y favorece la orientación correcta del cromosoma. No basta, por tanto, con que un microtúbulo toque un cinetocoro: la conexión debe tener una orientación compatible con la segregación y una estabilidad apropiada para soportar las fuerzas que aparecen durante el movimiento cromosómico.
Microtúbulos interpol ares
Los microtúbulos interpolares se extienden desde polos opuestos y establecen interacciones con microtúbulos procedentes del polo contrario, especialmente en la región central del huso. Las proteínas motoras y otras proteínas asociadas facilitan el deslizamiento, el entrecruzamiento y la organización de estos filamentos. Estas interacciones contribuyen a mantener la bipolaridad del huso y a generar fuerzas que separan los polos durante determinadas etapas de la mitosis.
La función de los microtúbulos interpolares es especialmente relevante porque los polos no se mantienen separados únicamente por una estructura estática. La arquitectura del huso resulta de un equilibrio dinámico entre fuerzas de deslizamiento, fuerzas de entrecruzamiento, anclajes y restricciones mecánicas impuestas por el resto de la célula. La interacción entre los filamentos y las proteínas motoras contribuye a estabilizar la estructura bipolar frente a las perturbaciones.
Microtúbulos astrales
Los microtúbulos astrales se proyectan desde los polos hacia la periferia celular. En las células animales, pueden interactuar con la corteza celular mediante complejos proteicos que incluyen motores moleculares y proteínas adaptadoras. Estas interacciones contribuyen a orientar el huso dentro de la célula y a determinar su posición con respecto al eje de división.
La orientación espacial del huso es importante porque la segregación correcta de los cromosomas no garantiza, por sí sola, que la división del citoplasma produzca dos células con el tamaño y la distribución de componentes adecuados. La posición del huso ayuda a establecer el plano de división y, por tanto, influye en la organización de las células hijas. No obstante, los mecanismos concretos de orientación dependen del tipo celular y del contexto del desarrollo.
Composición molecular y proteínas reguladoras
El huso mitótico no está constituido únicamente por microtúbulos. Su funcionamiento requiere una red de proteínas que regula la nucleación, el crecimiento, el acortamiento, la unión entre filamentos, la generación de fuerzas, la captura de cromosomas y la vigilancia de la segregación. Se han identificado aproximadamente 200 proteínas asociadas con las funciones del huso, aunque su número y clasificación dependen de los criterios experimentales utilizados para definir los componentes esenciales o asociados.
Tubulina
Es la unidad estructural de los microtúbulos. Los heterodímeros de α-tubulina y β-tubulina se ensamblan para formar los filamentos, cuya dinámica permite explorar el espacio celular, establecer conexiones y producir desplazamientos cromosómicos.
γ-tubulina y complejos de nucleación
Los complejos que contienen γ-tubulina favorecen el inicio de la formación de microtúbulos. Su actividad contribuye a establecer nuevos filamentos y a organizar la red necesaria para construir el huso. La nucleación también puede producirse mediante mecanismos asociados con la cromatina y con microtúbulos preexistentes.
Proteínas motoras: quinesinas y dineínas
Transforman la energía química derivada de la hidrólisis de adenosín trifosfato en movimiento y fuerza. Según su tipo, pueden transportar estructuras, deslizar microtúbulos entre sí, contribuir a separar los polos o participar en el posicionamiento del huso. Sus actividades deben coordinarse para mantener una geometría funcional.
Proteínas del cinetocoro
Forman una interfaz molecular entre el cromosoma y los microtúbulos. Permiten establecer conexiones mecánicas, regular su estabilidad y transmitir señales relacionadas con la correcta unión cromosómica. Su organización cambia durante la progresión mitótica.
Quinasas reguladoras, incluida Aurora B
Modifican proteínas mediante fosforilación y contribuyen a corregir uniones incorrectas entre los cinetocoros y los microtúbulos. Esta regulación permite desestabilizar determinadas conexiones defectuosas para que puedan establecerse otras más apropiadas.
Proteínas asociadas con los microtúbulos
Las proteínas asociadas con los microtúbulos regulan su longitud, estabilidad, organización y capacidad de interactuar con otras estructuras. Algunas favorecen la estabilización de los filamentos, mientras que otras facilitan su remodelación o el agrupamiento de microtúbulos en haces. Esta diversidad funcional es necesaria porque las distintas regiones del huso tienen exigencias mecánicas diferentes: los filamentos que se conectan con los cinetocoros deben transmitir fuerzas, mientras que otros deben reorganizarse para mantener la arquitectura bipolar.
Entre estas proteínas se encuentran factores que promueven la nucleación, proteínas que reconocen los extremos de los microtúbulos y factores de entrecruzamiento que conectan filamentos próximos. Sus actividades no son independientes: la estabilidad de una región del huso puede depender de la dinámica de los microtúbulos, de la actividad de motores y de la regulación de los puntos de contacto entre filamentos. Por ello, el huso debe entenderse como una red molecular integrada y no como una colección de componentes aislados.
¿Cómo se forma el huso mitótico?
La formación del huso es un proceso progresivo que comienza durante la preparación para la mitosis y continúa mientras la célula establece conexiones correctas con todos sus cromosomas. En las células animales que utilizan centrosomas, la separación de estos centros organizadores contribuye a establecer dos polos. Paralelamente, la nucleación y la reorganización de microtúbulos permiten construir una red capaz de capturar los cromosomas y formar una estructura bipolar.
Duplicación y separación de los centrosomas
Durante el ciclo celular, el centrosoma se duplica para que existan dos centros organizadores disponibles al comienzo de la mitosis. La separación progresiva de estos centrosomas contribuye a establecer polos opuestos, desde los cuales se organiza una parte importante de los microtúbulos del huso. Esta separación debe coordinarse con los mecanismos que regulan la organización del citoesqueleto y la progresión del ciclo celular.
La existencia de dos centrosomas no garantiza automáticamente la formación de un huso funcional. Es necesario que los microtúbulos se organicen de manera adecuada, que los polos se mantengan separados y que las conexiones con los cromosomas se establezcan sin errores persistentes. En consecuencia, la bipolaridad es una propiedad emergente de la coordinación entre la nucleación, la dinámica de los filamentos y las interacciones mecánicas que mantienen la arquitectura del huso.
Nucleación de los microtúbulos
La nucleación consiste en la formación inicial de un microtúbulo a partir de componentes de tubulina. Es un paso fundamental porque los microtúbulos no pueden organizar una red extensa si no existen estructuras iniciales que permitan su crecimiento. En las células animales se reconocen tres vías principales que contribuyen al ensamblaje del huso: la nucleación asociada con los centrosomas, la nucleación relacionada con la cromatina y la nucleación asociada con microtúbulos preexistentes.
La vía centrosómica genera microtúbulos desde centros organizadores situados cerca de los polos. La vía relacionada con la cromatina favorece la formación de microtúbulos en las proximidades de los cromosomas, mientras que la vía asociada con microtúbulos preexistentes permite generar nuevos filamentos a partir de una red ya formada. La combinación de estas vías aumenta la capacidad de construir un huso cuando la nucleación centrosómica, por sí sola, no proporciona todos los filamentos necesarios.
La coexistencia de distintas vías de nucleación explica por qué el ensamblaje del huso puede ser robusto ante determinadas perturbaciones. Si una vía produce una cantidad insuficiente de microtúbulos, otras pueden contribuir a mantener la formación de la red. Sin embargo, esta redundancia no significa que todas las vías sean equivalentes ni que cualquier alteración pueda compensarse por completo: la contribución de cada mecanismo depende del tipo celular y de las condiciones experimentales.
Captura de los cromosomas
Una vez formados, los microtúbulos deben establecer contacto con los cinetocoros. Una parte importante de este proceso se explica mediante el mecanismo conocido como búsqueda y captura: los extremos dinámicos de los microtúbulos exploran el espacio celular y, cuando encuentran un cinetocoro, pueden establecer una conexión que posteriormente se estabiliza. Este mecanismo permite localizar estructuras cromosómicas dispersas dentro de la célula sin que cada cromosoma necesite disponer de un microtúbulo previamente conectado.
La captura inicial no siempre produce una unión correcta. Un microtúbulo puede conectarse con un cinetocoro desde una orientación inadecuada, o las conexiones pueden no distribuirse apropiadamente entre los polos. Por ello, el establecimiento de contactos debe ir acompañado de mecanismos que evalúen y corrijan su configuración. La dinámica de los microtúbulos, la regulación del cinetocoro y la actividad de quinasas contribuyen conjuntamente a este proceso.
Organización y maduración del huso
Después de la captura inicial, las interacciones entre microtúbulos, motores moleculares y proteínas de entrecruzamiento reorganizan la red. Los filamentos se agrupan, se deslizan unos respecto de otros y contribuyen a establecer una estructura bipolar en la que los cromosomas pueden formar conexiones con ambos polos. La maduración del huso requiere, por tanto, tanto la construcción de una arquitectura estable como la eliminación o corrección de conexiones defectuosas.
Este proceso es dinámico incluso cuando el huso parece mantener una forma estable. Los microtúbulos continúan renovándose, las conexiones con los cinetocoros se ajustan y las proteínas reguladoras modifican la organización de la red. La estabilidad funcional del huso no equivale a la inmovilidad de sus componentes, sino a la capacidad de conservar una organización global adecuada mientras sus elementos se encuentran en constante remodelación.
El huso mitótico durante las fases de la mitosis
La función del huso cambia a medida que progresa la mitosis. Durante las primeras etapas, predomina su ensamblaje y la captura de los cromosomas; posteriormente, la actividad se concentra en la alineación cromosómica, la preparación para la separación de las cromátidas hermanas y su desplazamiento hacia polos opuestos. Finalmente, el huso contribuye a organizar la segregación del material genético y la transición hacia la división celular.
Profase: preparación de la maquinaria mitótica
La cromatina comienza a condensarse y los cromosomas se vuelven progresivamente más distinguibles. En las células animales, los centrosomas se separan y contribuyen a organizar los polos del futuro huso. Los microtúbulos comienzan a reorganizarse para formar una red apropiada para la captura cromosómica.
Prometafase: captura y establecimiento de conexiones
En las células con envoltura nuclear, su desorganización permite que los microtúbulos del huso accedan a los cromosomas. Los cinetocoros establecen conexiones con los microtúbulos, y las uniones se reorganizan hasta favorecer la orientación bipolar. Durante esta etapa, el sistema de vigilancia del ensamblaje del huso detecta problemas en las conexiones y contribuye a retrasar la progresión mitótica.
Metafase: alineación cromosómica
Los cromosomas se organizan aproximadamente en el plano ecuatorial del huso. La alineación depende de las fuerzas que actúan sobre los cinetocoros, de la dinámica de los microtúbulos y de la geometría de las conexiones con los polos. La metafase no constituye únicamente una disposición visual: refleja una organización mecánica que favorece la separación posterior de las cromátidas hermanas.
Anafase: separación y desplazamiento
Una vez satisfechos los requisitos para iniciar la segregación, las cromátidas hermanas se separan. Los microtúbulos cinetocóricos contribuyen a su desplazamiento hacia los polos, mientras que las interacciones entre microtúbulos interpolares favorecen la separación de los polos. Se distinguen una anafase A, caracterizada principalmente por el movimiento de los cromosomas hacia los polos, y una anafase B, asociada con el aumento de la distancia entre los polos. Ambos procesos pueden solaparse temporalmente.
Telofase y citocinesis: conclusión de la división
Los cromosomas llegan a regiones opuestas y comienza la reorganización de los núcleos hijos. La red del huso se modifica y parte de sus microtúbulos participa en la organización de la región central de la célula durante la citocinesis. La división del citoplasma completa la separación física de las células hijas.
Es importante señalar que esta secuencia representa el esquema general de la mitosis en muchas células animales. La duración de cada fase, la organización de los microtúbulos y el comportamiento de la envoltura nuclear pueden variar entre organismos y tipos celulares. Además, algunos procesos se solapan y no deben interpretarse como acontecimientos completamente independientes.
¿Cómo genera fuerzas el huso mitótico?
Una de las propiedades más importantes del huso es su capacidad para generar y transmitir fuerzas sin constituir una estructura rígida. Su comportamiento resulta de la interacción entre filamentos dinámicos, proteínas motoras, complejos de unión y restricciones mecánicas impuestas por los cromosomas y el entorno celular. La forma del huso y los movimientos cromosómicos emergen de la actividad colectiva de estos componentes.
Polimerización y despolimerización de los microtúbulos
La polimerización incorpora subunidades de tubulina y alarga el microtúbulo, mientras que la despolimerización elimina subunidades y acorta el filamento. Cuando un microtúbulo se encuentra conectado con un cinetocoro, estos cambios pueden contribuir al desplazamiento del cromosoma. La relación entre la dinámica del extremo y la conexión con el cinetocoro permite convertir cambios moleculares en movimiento a escala celular.
La importancia de este mecanismo reside en que las conexiones cinetocóricas deben combinar estabilidad y flexibilidad. Una unión excesivamente inestable no transmitiría fuerzas de manera eficaz, mientras que una conexión incapaz de remodelarse podría dificultar la corrección de errores. El huso necesita, por tanto, una regulación precisa de la dinámica de los microtúbulos y de la resistencia mecánica de sus conexiones.
Actividad de las proteínas motoras
Las proteínas motoras utilizan energía química para producir desplazamientos relativos entre microtúbulos o transportar estructuras asociadas con ellos. Algunas quinesinas favorecen el deslizamiento de microtúbulos antiparalelos, mientras que otras participan en la organización de haces o en la regulación de la dinámica de sus extremos. La dineína interviene, entre otras funciones, en interacciones con la corteza celular y en la generación de fuerzas que pueden influir en la posición del huso. Las funciones específicas dependen de la proteína, de sus interacciones y del contexto celular.
La generación de fuerzas no depende de una única proteína. Los motores actúan dentro de una red en la que los filamentos pueden estar conectados, deslizarse, separarse o quedar restringidos por otras estructuras. El equilibrio entre estas actividades contribuye a determinar la longitud del huso, la separación de los polos y la posición de los cromosomas. Por ello, una alteración de la actividad motora puede producir defectos que van más allá de la velocidad del movimiento: también puede modificar la arquitectura general del huso.
Tensión mecánica y orientación cromosómica
Cuando los cinetocoros de las cromátidas hermanas se conectan con polos opuestos, las fuerzas que actúan sobre las conexiones generan tensión a través de la estructura cromosómica. Esta tensión se relaciona con la geometría y la estabilidad de las uniones, pero no debe considerarse una prueba infalible de que todas las conexiones son correctas. La vigilancia de los cinetocoros integra información sobre la ocupación por microtúbulos, la tensión y el estado molecular de los complejos que regulan las conexiones.
La tensión adecuada contribuye a estabilizar determinadas configuraciones correctas, mientras que las conexiones incorrectas pueden ser desestabilizadas por mecanismos de corrección. Este comportamiento es fundamental porque una unión puede ser físicamente estable y, sin embargo, resultar inadecuada para la segregación. La célula necesita discriminar entre conexiones que permiten una distribución cromosómica correcta y aquellas que podrían conducir a errores.
El punto de control del ensamblaje del huso mitótico
El punto de control del ensamblaje del huso, conocido internacionalmente como spindle assembly checkpoint, es un sistema de vigilancia molecular que retrasa la progresión hacia la anafase cuando persisten cromosomas con cinetocoros no unidos o conexiones insuficientemente establecidas. Su función principal consiste en impedir que la separación de las cromátidas hermanas comience antes de que el aparato de segregación haya alcanzado un estado apropiado.
¿Por qué es necesario este punto de control?
La separación prematura de las cromátidas hermanas puede hacer que ambas copias de un cromosoma se desplacen hacia la misma célula hija o que una de ellas no se incorpore adecuadamente a ninguna de las dos. Estos errores pueden generar células con un número anormal de cromosomas, una condición denominada aneuploidía. El punto de control disminuye el riesgo de que la célula complete la mitosis cuando todavía existen problemas importantes de conexión entre los cromosomas y los microtúbulos.
La lógica del mecanismo es preventiva: resulta más seguro retrasar la separación que permitir una segregación con errores potencialmente irreversibles. Sin embargo, el punto de control no constituye una garantía absoluta de fidelidad. Su eficacia depende de la integridad de sus componentes, de la capacidad de detectar conexiones problemáticas y de la coordinación con los mecanismos que corrigen los errores.
¿Cómo funciona a nivel molecular?
Cuando existen cinetocoros que no han establecido conexiones adecuadas, se favorece la formación de una señal inhibitoria que impide la activación prematura del complejo promotor de la anafase, conocido como APC/C. Esta regulación mantiene inhibida la maquinaria que permite avanzar hacia la separación de las cromátidas hermanas. Cuando las conexiones alcanzan un estado compatible con la progresión mitótica, la señal inhibitoria disminuye y se permite la activación de los procesos que conducen a la anafase.
El punto de control integra una red de proteínas, entre las que se encuentran MAD1, MAD2, BUB1, BUBR1 y BUB3, así como otros reguladores que participan en la formación, amplificación o silenciamiento de la señal. Estas proteínas intervienen en diferentes pasos de la vigilancia, desde el reconocimiento de cinetocoros no unidos hasta la inhibición de los mecanismos que promueven la transición a la anafase. La actividad de la red depende de interacciones moleculares reguladas y de cambios en el estado de los cinetocoros durante la mitosis.
Es esencial distinguir dos funciones complementarias. El punto de control retrasa la progresión mitótica cuando detecta condiciones inadecuadas, mientras que los mecanismos de corrección modifican las conexiones defectuosas. El primero no reemplaza al segundo: detener el ciclo celular concede tiempo para corregir los problemas, pero la corrección requiere procesos moleculares capaces de desestabilizar uniones inapropiadas y facilitar el establecimiento de otras correctas.
Errores en el huso mitótico y sus consecuencias
La fidelidad de la segregación cromosómica depende de que el huso alcance una geometría apropiada, de que los cinetocoros establezcan conexiones correctas y de que los mecanismos de vigilancia funcionen de manera coordinada. Los defectos pueden aparecer durante el ensamblaje, la captura, la alineación, la corrección de conexiones o la separación de las cromátidas. Las consecuencias dependen de la naturaleza del defecto y de la capacidad de la célula para detectarlo o tolerarlo.
Uniones incorrectas entre cinetocoros y microtúbulos
Se reconocen diferentes configuraciones de unión que pueden conducir a errores de segregación.
- Unión sintélica: los dos cinetocoros de las cromátidas hermanas se conectan con el mismo polo. Esta configuración impide la orientación bipolar normal y puede conducir a una distribución incorrecta de las cromátidas si no se corrige.
- Unión merotélica: un cinetocoro establece conexiones con microtúbulos procedentes de ambos polos. Esta configuración puede persistir a pesar de la presencia de tensión y puede provocar que un cromosoma se retrase durante la anafase.
- Unión monotelica: solamente uno de los dos cinetocoros hermanos establece una conexión con el huso. La conexión incompleta puede activar el punto de control y retrasar la progresión mitótica.
- Unión anfitélica: cada cinetocoro hermano se conecta con un polo opuesto. Es la configuración apropiada para la segregación bipolar normal.
La existencia de estos estados explica por qué la captura inicial debe ir seguida de mecanismos de corrección y vigilancia. En particular, la unión merotélica constituye un desafío porque puede generar tensión y escapar parcialmente de la vigilancia, aunque la conexión siga siendo incorrecta.
Huso monopolar o multipolar
Un huso monopolar carece de una organización bipolar funcional y, por tanto, no proporciona la geometría normal de separación hacia dos polos opuestos. Un huso multipolar presenta más de dos polos, lo que puede favorecer distribuciones cromosómicas anormales. La organización incorrecta de los centrosomas, los defectos de agrupamiento de microtúbulos y las alteraciones de las proteínas motoras pueden contribuir a estas configuraciones.
En algunas células, los polos adicionales pueden agruparse en una estructura bipolar aparente, pero este proceso no garantiza que todas las conexiones cinetocóricas sean correctas. La geometría global del huso y la calidad de las uniones individuales constituyen niveles distintos de control, ambos necesarios para una segregación fiable.
Aneuploidía e inestabilidad cromosómica
Cuando los cromosomas se distribuyen de manera desigual, las células hijas pueden recibir cantidades diferentes de determinadas copias cromosómicas. Esta condición se denomina aneuploidía. Si las alteraciones de segregación se repiten a lo largo de varias divisiones, puede generarse inestabilidad cromosómica, caracterizada por una tendencia persistente a ganar o perder cromosomas.
La aneuploidía puede alterar el equilibrio de expresión génica y la fisiología celular. En el contexto del cáncer, la inestabilidad cromosómica se asocia con una gran heterogeneidad genética entre las células tumorales y puede contribuir a la evolución de las poblaciones tumorales. No obstante, la relación entre errores mitóticos y cáncer es compleja: la aneuploidía no produce necesariamente un tumor, y sus efectos dependen del contexto genético, del tipo celular y de las respuestas celulares a la alteración cromosómica.
Fallos de segregación y consecuencias para el organismo
Los errores cromosómicos pueden tener consecuencias diferentes según ocurran en células somáticas o en células de la línea germinal. En células somáticas, pueden generar poblaciones celulares con constituciones cromosómicas distintas, alterar la función de los tejidos o contribuir a la progresión tumoral. En la línea germinal, los defectos de segregación durante la meiosis pueden producir gametos con un número anormal de cromosomas y, tras la fecundación, contribuir a alteraciones del desarrollo o a la pérdida gestacional. Es importante no confundir la mitosis con la meiosis: ambas utilizan husos basados en microtúbulos, pero difieren en la organización de los cromosomas y en el resultado de la división.
Diferencias entre el huso mitótico y el huso meiótico
El huso mitótico y el huso meiótico comparten principios estructurales y moleculares, pero cumplen funciones diferentes debido a que la mitosis conserva la dotación cromosómica de las células hijas, mientras que la meiosis reduce el número de juegos cromosómicos y participa en la formación de gametos. En ambos procesos, los microtúbulos se conectan con los cinetocoros y generan fuerzas que permiten la segregación, pero las unidades cromosómicas que se separan y la regulación de sus conexiones varían según la división.
| Característica | Huso mitótico | Huso meiótico |
| Función principal | Distribuir los cromosomas duplicados entre dos células hijas. | Participar en dos divisiones que reducen el número de juegos cromosómicos y producen células haploides. |
| Primera segregación | Se separan las cromátidas hermanas. | En la primera división se separan principalmente los cromosomas homólogos. |
| Segunda división | No corresponde a una segunda división mitótica dentro del mismo ciclo. | En la segunda división se separan las cromátidas hermanas. |
| Organización cromosómica | Los cromosomas se alinean individualmente en el plano ecuatorial. | En la primera división, los cromosomas homólogos se organizan como pares, con conexiones reguladas por la recombinación y la cohesión cromosómica. |
| Resultado habitual | Dos células con una dotación cromosómica equivalente a la de la célula progenitora, si la segregación es correcta. | Cuatro productos haploides tras una meiosis completa, aunque su viabilidad y el número de productos funcionales dependen del organismo. |
La diferencia más importante es que durante la primera división meiótica deben separarse los cromosomas homólogos sin separar prematuramente las cromátidas hermanas. Para lograrlo, las conexiones entre los cinetocoros, la cohesión entre cromátidas y la organización de los pares de homólogos presentan una regulación especializada. En la mitosis, por el contrario, la orientación bipolar de los cinetocoros hermanos prepara directamente la separación de las cromátidas.
El punto de control del huso también interviene en la meiosis, pero su comportamiento y eficacia varían según el organismo, el sexo, la etapa meiótica y el tipo celular. Por esta razón, no es correcto asumir que el sistema de vigilancia funciona de forma idéntica en todas las divisiones mitóticas y meióticas.
Importancia del huso mitótico en la investigación biomédica
El estudio del huso mitótico es relevante para comprender la proliferación celular, el mantenimiento de la estabilidad del genoma y los mecanismos que permiten a las células responder a alteraciones de la división. Debido a que su funcionamiento depende de microtúbulos dinámicos y proteínas motoras, constituye también una diana importante para sustancias que interfieren con la división celular.
Relación con el tratamiento del cáncer
Diversos medicamentos antineoplásicos actúan sobre los microtúbulos y alteran su dinámica. Algunas sustancias estabilizan los microtúbulos y dificultan su despolimerización, mientras que otras interfieren con su formación o estabilidad. Estas perturbaciones pueden comprometer el ensamblaje y la función del huso, activar respuestas de vigilancia mitótica y retrasar o impedir la división celular.
Sin embargo, la actividad antitumoral de estos medicamentos no se explica exclusivamente por la detención mitótica. Las consecuencias dependen de la sustancia, la concentración, la duración de la exposición y las características de las células tratadas. Además, las células tumorales pueden responder de distintas maneras a la alteración del huso, incluida la detención prolongada, la muerte celular o la salida de la mitosis con alteraciones cromosómicas. Por ello, no debe interpretarse que cualquier perturbación del huso provoca necesariamente la muerte de una célula cancerosa.
Relación con la estabilidad del genoma
El huso mitótico contribuye a mantener la estabilidad del genoma porque establece el sistema mecánico que distribuye los cromosomas y participa en la vigilancia de la correcta segregación. Cuando sus componentes funcionan adecuadamente, disminuye el riesgo de errores cromosómicos; cuando existen defectos persistentes en las conexiones, en la bipolaridad o en los mecanismos de control, aumenta la probabilidad de que algunas divisiones produzcan células con dotaciones cromosómicas anormales.
El mantenimiento de la estabilidad genómica requiere, por tanto, más que un huso con una apariencia normal. También exige que los cinetocoros se conecten con los microtúbulos de manera apropiada, que las conexiones defectuosas puedan corregirse y que la transición a la anafase ocurra en el momento adecuado. La combinación de arquitectura, dinámica molecular y vigilancia explica por qué el huso es un sistema tan importante para la reproducción celular fiable.

FUENTE Y BIBLIOGRAFÍA RECOMENDADA:
- DeLuca, J. G. (2010). Kinetochore-microtubule dynamics and attachment stability. Methods in Cell Biology, 97, 53–79. https://doi.org/10.1016/S0091-679X(10)97004-0
- Gorbsky, G. J. (2015). The spindle checkpoint and chromosome segregation in meiosis. The FEBS Journal, 282(13), 2471–2487. https://doi.org/10.1111/febs.13166
- Hara, M., & Fukagawa, T. (2020). Dynamics of kinetochore structure and its regulations during mitotic progression. Cellular and Molecular Life Sciences, 77, 2981–2995. https://doi.org/10.1007/s00018-020-03472-4
- Kapoor, T. M. (2017). Metaphase spindle assembly. Biology, 6(1), Article 8. https://doi.org/10.3390/biology6010008
- Malmanche, N., Maia, A., & Sunkel, C. E. (2006). The spindle assembly checkpoint: Preventing chromosome mis-segregation during mitosis and meiosis. FEBS Letters, 580(12), 2888–2895. https://doi.org/10.1016/j.febslet.2006.03.081
- Musacchio, A., & Salmon, E. D. (2007). The spindle-assembly checkpoint in space and time. Nature Reviews Molecular Cell Biology, 8, 379–393. https://doi.org/10.1038/nrm2163
- Petry, S. (2016). Mechanisms of mitotic spindle assembly. Annual Review of Biochemistry, 85, 659–683. https://doi.org/10.1146/annurev-biochem-060815-014528
- Prosser, S. L., & Pelletier, L. (2017). Mitotic spindle assembly in animal cells: A fine balancing act. Nature Reviews Molecular Cell Biology, 18, 187–201. https://doi.org/10.1038/nrm.2016.162
- Tanaka, K. (2013). Regulatory mechanisms of kinetochore–microtubule interaction in mitosis. Cellular and Molecular Life Sciences, 70(4), 559–579. https://doi.org/10.1007/s00018-012-1057-7
- Valdez, V. A., Neahring, L., Petry, S., et al. (2023). Mechanisms underlying spindle assembly and robustness. Nature Reviews Molecular Cell Biology, 24, 523–542. https://doi.org/10.1038/s41580-023-00584-0
- Vader, G., Maia, A. F., & Lens, S. M. A. (2008). The chromosomal passenger complex and the spindle assembly checkpoint: Kinetochore-microtubule error correction and beyond. Cell Division, 3, Article 10. https://doi.org/10.1186/1747-1028-3-10