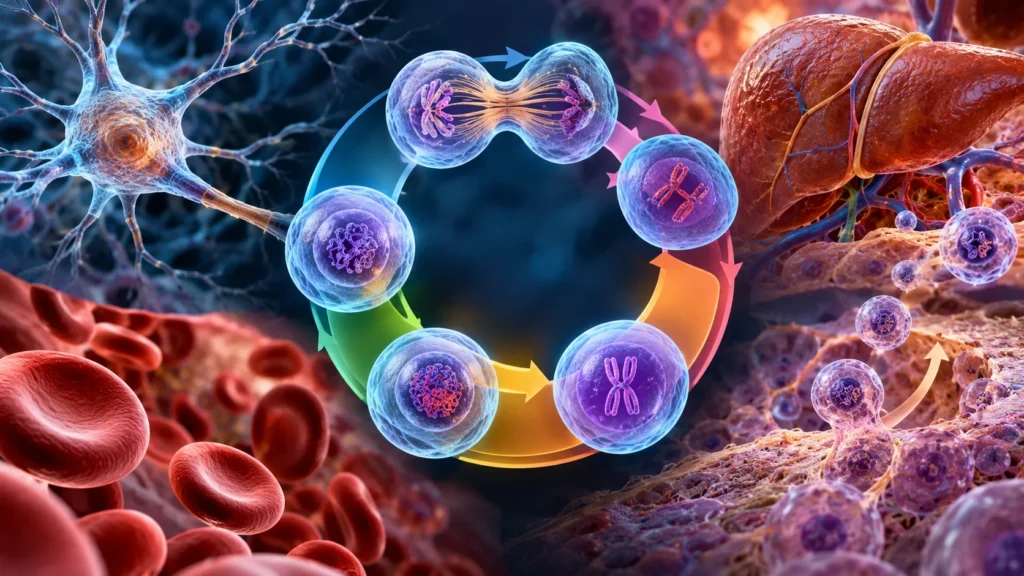

La interfase comprende el período del ciclo celular que transcurre entre el final de una mitosis y el comienzo de la siguiente. No debe interpretarse como una etapa de inactividad celular: por el contrario, durante la interfase se producen procesos metabólicos, biosintéticos, estructurales y reguladores indispensables para que la célula pueda crecer, duplicar su material genético y preparar una nueva división. En el ciclo celular proliferativo convencional, la interfase se subdivide en las fases G1, S y G2. La fase G1 sigue inmediatamente a la mitosis; la fase S se caracteriza por la replicación del DNA; y la fase G2 precede a la mitosis y permite completar la preparación para la segregación cromosómica. Esta organización temporal permite coordinar el crecimiento celular con la duplicación del genoma y con la posterior distribución de una copia completa del material genético a cada célula hija.
Al finalizar la mitosis, las células hijas poseen un conjunto cromosómico equivalente al de la célula progenitora y comienzan la fase G1. Durante G1 no se produce todavía la replicación del DNA cromosómico; esta característica distingue esta fase de la fase S, en la que cada molécula de DNA debe ser duplicada antes de que pueda ocurrir una nueva mitosis. Sin embargo, afirmar que durante G1 simplemente «no hay síntesis de DNA» requiere una precisión importante. Lo que no ocurre es la replicación del genoma completo característica de la fase S. Las células continúan sintetizando RNA y proteínas, reparando DNA, modificando su metabolismo, aumentando su masa y reorganizando componentes celulares. Por ello, G1 constituye un período de intensa actividad fisiológica en el que la célula evalúa si dispone de las condiciones necesarias para comprometerse con una nueva ronda de proliferación.
La duración de G1 es extraordinariamente variable entre diferentes tipos celulares y también puede cambiar dentro de una misma población celular dependiendo de las condiciones fisiológicas. Esta variabilidad explica por qué algunas células pueden atravesar G1 en pocas horas, mientras que otras pueden permanecer durante períodos mucho más prolongados antes de iniciar la replicación del DNA. La duración de esta fase está determinada por la integración de señales procedentes del entorno extracelular, disponibilidad de nutrientes, factores de crecimiento, tamaño celular, estado energético, integridad del DNA y programas específicos de diferenciación. De esta manera, G1 funciona como un período de decisión durante el cual la célula determina si continuará hacia la duplicación de su genoma o si abandonará temporal o permanentemente el ciclo proliferativo.
Una característica fundamental de G1 es la existencia de un sistema molecular que coordina la progresión del ciclo celular con las condiciones internas y externas de la célula. En células animales, la presencia de factores de crecimiento favorece la activación de vías de señalización que incrementan la expresión de proteínas necesarias para la proliferación. Entre los componentes centrales de este sistema se encuentran las proteínas reguladoras denominadas ciclinas y las cinasas dependientes de ciclina. Durante G1, la actividad de determinados complejos ciclina-cinasa favorece la progresión hacia la fase S, mientras que mecanismos inhibidores pueden detener el ciclo cuando las condiciones celulares son desfavorables o cuando existe daño genómico.
Un punto particularmente importante de esta regulación se encuentra en la transición entre G1 y S. La proteína del retinoblastoma constituye uno de los principales reguladores de esta transición. En células que permanecen en un estado proliferativo, la activación progresiva de complejos formados por ciclina D y cinasas dependientes de ciclina favorece la fosforilación de la proteína del retinoblastoma. Esto modifica su capacidad para inhibir factores de transcripción de la familia E2F, permitiendo la expresión de numerosos genes necesarios para la síntesis y replicación del DNA. Como consecuencia, la célula puede superar un punto de compromiso proliferativo y avanzar hacia la fase S.
Esta regulación es particularmente importante porque la replicación del DNA representa un proceso que exige una coordinación extraordinariamente precisa. La célula no puede iniciar indiscriminadamente la duplicación de su genoma cada vez que recibe una señal proliferativa. Antes de entrar en la fase S, debe haber alcanzado un estado fisiológico compatible con la replicación, y debe disponer de los componentes moleculares necesarios para producir nuevas moléculas de DNA. Además, los mecanismos de control del ciclo celular deben impedir que una misma región del genoma sea replicada más de una vez durante un ciclo celular. La coordinación entre crecimiento, regulación transcripcional, preparación de los orígenes de replicación y activación de las cinasas dependientes de ciclina permite que cada segmento cromosómico sea duplicado una sola vez por ciclo.
La duración de G1 también está estrechamente relacionada con la diferenciación celular. Una célula que recibe señales que favorecen la proliferación puede mantener activa la maquinaria del ciclo celular y avanzar hacia la fase S. En cambio, cuando predominan señales que favorecen la diferenciación o cuando desaparecen los estímulos proliferativos, determinadas células pueden abandonar el ciclo celular y entrar en un estado denominado G0. Por esta razón, G0 no debe considerarse simplemente una cuarta fase obligatoria del ciclo celular equivalente a G1, S y G2. Se trata más apropiadamente de un estado de salida del ciclo proliferativo cuya duración y reversibilidad dependen del tipo celular y de su contexto fisiológico.
Las células que se encuentran en G0 presentan una actividad metabólica que puede ser considerablemente elevada, aunque no estén proliferando. Por consiguiente, «detención del ciclo celular» no significa «inactividad celular». Una célula diferenciada puede continuar desempeñando funciones fisiológicas especializadas durante largos períodos sin replicar su DNA ni dividirse. La salida del ciclo puede estar acompañada por cambios profundos en la expresión génica, organización de la cromatina, metabolismo y arquitectura celular. En determinados tejidos, este estado puede ser reversible; en otros, la pérdida de la capacidad proliferativa puede adquirir características prácticamente permanentes.
Las neuronas constituyen un ejemplo clásico de células altamente diferenciadas que, en condiciones fisiológicas normales, permanecen fuera del ciclo celular durante períodos prolongados. Después de completar su diferenciación, la mayoría de las neuronas maduras no participa en ciclos sucesivos de replicación del DNA y mitosis. En lugar de proliferar, mantienen un estado diferenciado especializado en la transmisión y procesamiento de información. Sin embargo, desde el punto de vista molecular, la regulación del ciclo celular en neuronas es más compleja que una simple ausencia de las proteínas del ciclo. Se ha demostrado que neuronas maduras pueden expresar o activar componentes de la maquinaria del ciclo celular bajo determinadas condiciones patológicas, y que una reentrada aberrante en el ciclo puede asociarse con disfunción neuronal y muerte celular. Por ello, la permanencia de las neuronas diferenciadas fuera del ciclo proliferativo constituye un estado activamente regulado y no simplemente una consecuencia pasiva de la ausencia de división.
El ejemplo de los eritrocitos requiere todavía mayor precisión. Los eritrocitos maduros de los mamíferos no solamente permanecen fuera del ciclo celular, sino que pierden el núcleo durante su proceso de diferenciación terminal y, por consiguiente, carecen del genoma nuclear necesario para iniciar una nueva ronda de replicación del DNA y división celular. La eritropoyesis ocurre a partir de células progenitoras hematopoyéticas y precursores eritroides nucleados; durante la maduración eritroide se produce la expulsión del núcleo y se generan eritrocitos maduros especializados en el transporte de oxígeno. Por ello, describir a los eritrocitos maduros simplemente como células que permanecen detenidas en G0 es una simplificación: su estado final representa una diferenciación terminal acompañada de enucleación, de modo que ya no poseen la maquinaria nuclear requerida para regresar al ciclo celular.
La capacidad de abandonar G1 y entrar en G0 también depende profundamente del tejido al que pertenece la célula. Existen células que pueden permanecer en un estado quiescente y regresar posteriormente al ciclo cuando reciben estímulos adecuados. La quiescencia es, por tanto, una condición reversible de detención proliferativa. Las células quiescentes reducen la actividad asociada con la proliferación, pero conservan la capacidad de responder a determinadas señales que pueden inducir su reentrada en el ciclo. Este mecanismo permite que los tejidos ajusten la proliferación a sus necesidades fisiológicas y constituye una estrategia fundamental para conservar recursos y evitar una proliferación innecesaria.
Las células hepáticas, o hepatocitos, proporcionan un ejemplo particularmente importante de esta capacidad. En el hígado adulto normal, muchos hepatocitos permanecen en un estado quiescente y presentan una proliferación relativamente baja. Sin embargo, después de una lesión hepática, se activan señales que estimulan la entrada de hepatocitos y otras poblaciones celulares relevantes en el ciclo celular. Los hepatocitos pueden entonces abandonar el estado quiescente, atravesar G1, replicar su DNA y completar la división celular. Esta capacidad contribuye de manera fundamental a la extraordinaria capacidad regenerativa del hígado.
La transición de hepatocitos quiescentes hacia la proliferación no ocurre de manera espontánea ni aislada. Una lesión tisular modifica profundamente el microambiente hepático y desencadena una respuesta coordinada que incluye señales procedentes de factores de crecimiento, citocinas, células inmunitarias, matriz extracelular y otros componentes del tejido. Estas señales modifican la expresión de genes que controlan el crecimiento y el ciclo celular, favoreciendo que los hepatocitos entren nuevamente en G1 y posteriormente avancen hacia la fase S. Entre las vías de señalización implicadas se encuentran las relacionadas con el factor de crecimiento de hepatocitos, el factor de crecimiento epidérmico, interleucinas y otras moléculas reguladoras de la regeneración hepática.
Este fenómeno demuestra por qué G0 no debe considerarse necesariamente un estado irreversible. En determinados tejidos, la célula puede pasar de un estado proliferativo a uno quiescente y regresar posteriormente al ciclo cuando cambia el contexto fisiológico. La reversibilidad depende de la naturaleza de la célula y del tipo de diferenciación que haya experimentado. Una célula quiescente conserva la capacidad de activar nuevamente la maquinaria del ciclo; una célula terminalmente diferenciada puede perder esa capacidad, mientras que determinadas células pueden sufrir cambios irreversibles asociados con senescencia o diferenciación terminal.
También es importante distinguir quiescencia de senescencia. En la quiescencia, la detención de la proliferación puede revertirse cuando desaparecen las condiciones que la produjeron y aparecen señales proliferativas apropiadas. En la senescencia, por el contrario, las células adquieren una detención proliferativa estable acompañada de modificaciones características de la expresión génica, metabolismo, secreción de moléculas y estructura celular. La senescencia puede inducirse, entre otras causas, por acortamiento de telómeros, daño persistente del DNA, estrés celular o activación aberrante de determinados oncogenes. Por ello, no toda célula que deja de dividirse debe clasificarse automáticamente como una célula en G0.
La interfase representa mucho más que el intervalo existente entre dos acontecimientos mitóticos. Constituye el período durante el cual la célula reorganiza su fisiología para determinar si crecerá, permanecerá temporalmente quiescente, se diferenciará, entrará en un estado de detención proliferativa estable o continuará hacia una nueva división. G1 desempeña una función central en esta decisión porque integra información relacionada con el tamaño celular, disponibilidad de nutrientes, factores de crecimiento, integridad del DNA y señales de diferenciación. Si las condiciones son adecuadas, la célula supera los mecanismos de control de G1, prepara y posteriormente replica su genoma durante la fase S, atraviesa G2 y finalmente entra en mitosis. Si las condiciones no son adecuadas o si el programa celular exige detener la proliferación, puede abandonar el ciclo y establecer un estado G0 reversible o, dependiendo del contexto, una condición de pérdida proliferativa más estable.
La importancia biológica de esta regulación radica en que la proliferación celular debe mantenerse estrictamente coordinada con las necesidades del organismo. Una proliferación insuficiente puede impedir el crecimiento, la reparación y la renovación de los tejidos, mientras que una proliferación excesiva o inapropiada puede favorecer la aparición de alteraciones neoplásicas. Los mecanismos que regulan la transición de G1 a S, por tanto, constituyen uno de los principales sistemas de protección frente a la proliferación celular descontrolada. Alteraciones en genes que codifican reguladores del ciclo celular, proteínas supresoras tumorales o componentes de las vías de señalización proliferativa pueden permitir que las células atraviesen los puntos de control pese a la presencia de daño genómico u otras condiciones adversas.
Por esta razón, la duración de G1 no debe entenderse simplemente como una medida del tiempo que necesita una célula para «descansar» después de la mitosis. Es un período de integración molecular en el que se determina si la célula está preparada para comprometerse con una nueva duplicación de su genoma. La gran variabilidad temporal observada entre diferentes células refleja, en buena medida, la diversidad de funciones que desempeñan los tejidos multicelulares y la necesidad de ajustar la proliferación a las circunstancias fisiológicas. Una célula destinada a proliferar rápidamente puede atravesar G1 con relativa rapidez, mientras que una célula diferenciada puede abandonar el ciclo durante períodos prolongados. La flexibilidad de este sistema permite que el organismo combine proliferación, diferenciación, mantenimiento tisular y reparación sin perder el control sobre la integridad del genoma.

FUENTE Y BIBLIOGRAFÍA RECOMENDADA:
- Alberts, B., Johnson, A., Lewis, J., Morgan, D., Raff, M., Roberts, K., & Walter, P. (2015). Molecular biology of the cell (6th ed.). Garland Science.
- Morgan, D. O. (2007). The cell cycle: Principles of control. New Science Press.
- Matthews, H. K., Bertoli, C., & de Bruin, R. A. M. (2022). Cell cycle control in cancer. Nature Reviews Molecular Cell Biology, 23, 74–88. https://doi.org/10.1038/s41580-021-00404-7
- Bertoli, C., Skotheim, J. M., & de Bruin, R. A. M. (2013). Control of cell cycle transcription during G1 and S phases. Nature Reviews Molecular Cell Biology, 14(8), 518–528. https://doi.org/10.1038/nrm3629
- Spencer, S. L., & Albeck, J. G. (2016). Mechanistic basis and implications of a quantitative single-cell view of cell cycle control. Current Opinion in Cell Biology, 39, 21–29. https://doi.org/10.1016/j.ceb.2016.01.002
- Matson, J. P., & Cook, J. G. (2017). Cell cycle proliferation decisions: The impact of single cell analyses. FEBS Journal, 284(3), 362–375. https://doi.org/10.1111/febs.13898
- Sherr, C. J. (1996). Cancer cell cycles. Science, 274(5293), 1672–1677. https://doi.org/10.1126/science.274.5293.1672
- Dyson, N. J. (1998). The regulation of E2F by pRB-family proteins. Genes & Development, 12(15), 2245–2262. https://doi.org/10.1101/gad.12.15.2245
- Weinberg, R. A. (1995). The retinoblastoma protein and cell cycle control. Cell, 81(3), 323–330. https://doi.org/10.1016/0092-8674(95)90385-2
- Blow, J. J., & Dutta, A. (2005). Preventing re-replication of chromosomal DNA. Nature Reviews Molecular Cell Biology, 6(6), 476–486. https://doi.org/10.1038/nrm1663
- Arias, E. E., & Walter, J. C. (2007). Strength in numbers: Preventing rereplication via multiple mechanisms in eukaryotic cells. Genes & Development, 21(5), 497–518. https://doi.org/10.1101/gad.1508907
- Coller, H. A., Sang, L., & Roberts, J. M. (2006). A new description of cellular quiescence. PLoS Biology, 4(3), e83. https://doi.org/10.1371/journal.pbio.0040083
- Yao, G. (2014). Modelling mammalian cellular quiescence. Interface Focus, 4(3), 20130074. https://doi.org/10.1098/rsfs.2013.0074
- Matson, J. P., & Cook, J. G. (2017). Cell cycle control in quiescence and senescence. Cold Spring Harbor Perspectives in Biology, 9(5), a022913. https://doi.org/10.1101/cshperspect.a022913
- Herrup, K., & Yang, Y. (2007). Cell cycle regulation in the postmitotic neuron: Oxymoron or new biology? Nature Reviews Neuroscience, 8(5), 368–378. https://doi.org/10.1038/nrn2124
- Folch, J., Junyent, F., Beas-Zárate, C., Rodríguez Farías, M. J., Bech-Serra, J. J., Papiol, S., & Camins, A. (2012). Role of cell cycle re-entry in brain aging and neurodegenerative diseases. Neurodegenerative Disease Management, 2(1), 101–113. https://doi.org/10.2217/nmt.11.83
- Ji, P., Murata-Hori, M., & Lodish, H. F. (2011). Formation of mammalian erythrocytes: A new look at the erythroid differentiation process. Blood, 117(15), 3980–3990. https://doi.org/10.1182/blood-2010-12-268268
- An, X., & Mohandas, N. (2011). Erythrocyte membrane and spectrin-actin function. Current Opinion in Hematology, 18(3), 152–159. https://doi.org/10.1097/MOH.0b013e32834451d5
- Michalopoulos, G. K. (2017). Hepatostat: Liver regeneration and normal liver tissue maintenance. Hepatology, 65(4), 1384–1392. https://doi.org/10.1002/hep.28988
- Michalopoulos, G. K., & DeFrances, M. C. (1997). Liver regeneration. Science, 276(5309), 60–66. https://doi.org/10.1126/science.276.5309.60
- Fausto, N., Campbell, J. S., & Riehle, K. J. (2006). Liver regeneration. Hepatology, 43(2 Suppl 1), S45–S53. https://doi.org/10.1002/hep.20969
- Taub, R. (2004). Liver regeneration: From myth to mechanism. Nature Reviews Molecular Cell Biology, 5(10), 836–847. https://doi.org/10.1038/nrm1489
- Gorgoulis, V., Adams, P. D., Alimonti, A., Bennett, D. C., Bischof, O., Bishop, C., Campisi, J., Collado, M., Evangelou, K., Ferbeyre, G., Gil, J., Hara, E., Krizhanovsky, V., Jurk, D., Piccolo, S., Passos, J. F., Robbins, P. D., Saffiotti, U., Salmonowicz, H., … Demaria, M. (2019). Cellular senescence: Defining a path forward. Cell, 179(4), 813–827. https://doi.org/10.1016/j.cell.2019.10.005
- Kuilman, T., Michaloglou, C., Mooi, W. J., & Peeper, D. S. (2010). The essence of senescence. Genes & Development, 24(22), 2463–2479. https://doi.org/10.1101/gad.1971610
- van Deursen, J. M. (2014). The role of senescent cells in ageing. Nature, 509(7501), 439–446. https://doi.org/10.1038/nature13193
- Hanahan, D. (2022). Hallmarks of cancer: New dimensions. Cancer Discovery, 12(1), 31–46. https://doi.org/10.1158/2159-8290.CD-21-1059