
La fase S constituye, propiamente, el intervalo en el que se activa la maquinaria de replicación y se sintetiza el DNA, mientras que G1 establece las condiciones necesarias para que esa duplicación pueda realizarse de manera completa y, sobre todo, una sola vez por ciclo celular.
Durante la fase G1, una célula eucariota que acaba de completar la división celular posee, en términos generales, un contenido de DNA equivalente a 2C, es decir, cada cromosoma está constituido por una única molécula de DNA bicatenario que corresponde a una cromátida. El término “diploide”, sin embargo, describe el número de juegos cromosómicos y no directamente la cantidad de DNA. Una célula diploide humana en G1 posee dos copias homólogas de cada cromosoma, una de origen materno y otra de origen paterno, pero cada cromosoma todavía no se encuentra duplicado en dos cromátidas hermanas. Por ello, es más preciso decir que durante G1 una célula diploide presenta un número cromosómico de 2n y un contenido de DNA de 2C. Esta distinción resulta fundamental para comprender qué cambia durante la fase S: el número de cromosomas no se duplica durante la replicación; se duplica el DNA de cada cromosoma.
La fase G1 también cumple una función preparatoria esencial porque durante este intervalo se produce el denominado licenciamiento de los orígenes de replicación. El genoma eucariota no se replica comenzando desde un único punto, sino a partir de numerosos sitios distribuidos a lo largo de cada cromosoma, denominados orígenes de replicación. La existencia de múltiples orígenes resulta necesaria porque los cromosomas eucariotas contienen cantidades enormes de DNA y una replicación iniciada desde un solo sitio no permitiría completar oportunamente la duplicación del genoma durante la duración normal de la fase S.
Durante G1, los orígenes de replicación adquieren la capacidad potencial de iniciar la síntesis de DNA mediante el ensamblaje de complejos proteicos denominados complejos de pre-replicación. En este proceso intervienen, entre otros componentes, el complejo de reconocimiento del origen, CDC6, CDT1 y el complejo helicasa MCM2–7. La función fundamental de esta etapa consiste en colocar sobre el DNA una maquinaria helicasa que permanecerá preparada para activarse posteriormente. En consecuencia, un origen que ha sido sometido a este proceso se considera licenciado. El licenciamiento no equivale todavía a la síntesis de DNA: constituye una preparación molecular previa que garantiza que el origen posee la maquinaria necesaria para iniciar la replicación cuando la célula alcance la fase S.
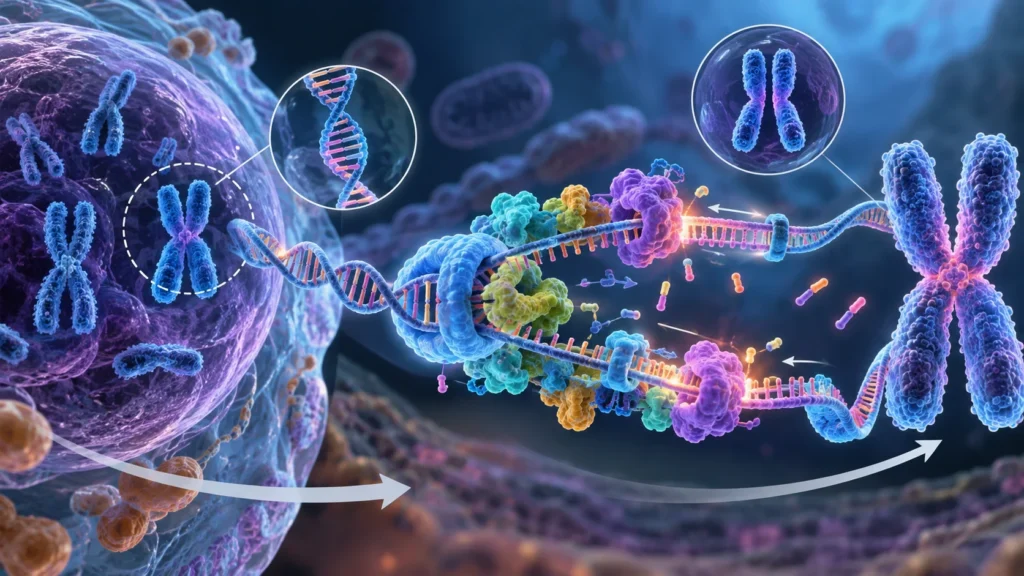
Esta separación temporal entre preparación y ejecución constituye uno de los principios fundamentales que permiten conservar la estabilidad del genoma. Durante G1, la célula puede preparar numerosos orígenes; cuando comienza S, algunos de estos orígenes son activados y las helicasas previamente cargadas se convierten en complejos helicasa activos asociados con la maquinaria replicativa. A partir de cada origen activado se establecen, en términos generales, dos horquillas de replicación que avanzan en direcciones opuestas. De esta manera, la replicación progresa bidireccionalmente y diferentes regiones del cromosoma pueden copiarse de manera simultánea.
Por consiguiente, la transición de G1 a S representa mucho más que un cambio temporal dentro del ciclo celular. Implica una modificación coordinada de la actividad de proteínas reguladoras y de la maquinaria de replicación. Durante G1, la actividad de determinadas quinasas dependientes de ciclinas es suficientemente baja como para permitir el establecimiento de los complejos de pre-replicación. En la transición hacia S, la actividad de quinasas dependientes de ciclinas y de la quinasa dependiente de CDC7 aumenta y permite la activación de los orígenes previamente licenciados. Esta regulación impide que un mismo origen pueda iniciar repetidamente la replicación durante una misma fase S.
Una vez iniciada la fase S, el DNA comienza a ser desenrollado localmente por las helicasas replicativas. La separación de las dos cadenas de DNA es indispensable porque cada cadena parental puede funcionar como molde para sintetizar una nueva cadena complementaria. El principio de complementariedad de bases permite que la información contenida en la molécula parental sea reproducida: una adenina dirige la incorporación de una timina y una guanina dirige la incorporación de una citosina en la nueva cadena. Debido a que cada una de las dos cadenas parentales sirve como molde para una nueva cadena, el resultado es una replicación semiconservativa: cada molécula hija de DNA contiene una cadena procedente de la molécula parental y una cadena recién sintetizada. Este principio fue demostrado experimentalmente mediante experimentos clásicos de marcaje isotópico y constituye la base molecular de la conservación de la información genética durante la división celular.
La síntesis de DNA tampoco ocurre de manera arbitraria. Las DNA polimerasas solamente pueden incorporar nucleótidos sobre el extremo 3′-OH de una cadena en crecimiento, por lo que la síntesis de DNA ocurre en dirección 5′→3′. Como las dos cadenas parentales son antiparalelas, la maquinaria replicativa debe resolver esta diferencia geométrica mediante dos modalidades de síntesis. Una cadena nueva puede sintetizarse de manera relativamente continua en dirección al avance de la horquilla, mientras que la otra se produce de manera discontinua mediante fragmentos que posteriormente son unidos. Esta organización permite que las dos cadenas parentales sean copiadas simultáneamente a pesar de su orientación opuesta.
La precisión de la replicación depende de varios niveles de control. La complementariedad de las bases proporciona una primera fuente de especificidad durante la incorporación de nucleótidos, pero la fidelidad final es considerablemente mayor debido a mecanismos adicionales de selección y corrección de errores. Las DNA polimerasas replicativas poseen mecanismos de corrección de pruebas que permiten eliminar una proporción importante de nucleótidos incorporados incorrectamente. Posteriormente, otros sistemas celulares pueden reconocer y reparar errores que hayan escapado a estos mecanismos. Por ello, afirmar que la fase S produce una “replicación precisa” es correcto en términos generales, pero debe entenderse que la precisión no significa ausencia absoluta de errores: significa que existen múltiples mecanismos moleculares que reducen extraordinariamente la frecuencia con la que aparecen errores durante la duplicación del genoma.
La expresión “replicación precisa del DNA de cada cromosoma” también necesita una precisión adicional. La replicación no produce simplemente una copia independiente y aislada de cada cromosoma. Durante S, cada molécula de DNA cromosómico se duplica y las dos moléculas resultantes permanecen asociadas como cromátidas hermanashasta etapas posteriores del ciclo celular. De esta manera, al finalizar la fase S, una célula diploide continúa teniendo 2n cromosomas, pero cada cromosoma está constituido por dos cromátidas hermanas y el contenido de DNA ha aumentado aproximadamente de 2C a 4C. Esta diferencia entre número de cromosomas y cantidad de DNA es esencial para evitar la interpretación incorrecta de que la fase S duplica el número cromosómico.
La célula debe controlar además que cada segmento del genoma sea replicado una sola vez. Este principio es tan importante como la necesidad de completar toda la replicación. Si una región cromosómica no se replicara, se perdería información genética durante la división celular. Pero si una misma región se replicara dos veces, aparecerían copias adicionales de determinadas secuencias, alterando la estructura y la estabilidad del genoma. Para evitar ambos extremos, el ciclo celular separa temporalmente dos procesos: el licenciamiento de los orígenes, que ocurre fundamentalmente durante G1, y la activación de esos orígenes, que ocurre durante S.
Una vez que la célula ha entrado en S, se activa una serie de mecanismos que impiden que nuevos complejos de pre-replicación sean ensamblados de manera funcional. Esto significa que un origen que ya ha iniciado la replicación no puede volver a adquirir las condiciones necesarias para iniciar una segunda ronda durante la misma fase S. En células eucariotas existen varios mecanismos complementarios para impedir esta relicenciación, entre ellos la regulación mediante quinasas dependientes de ciclinas, la degradación o inhibición de determinados factores de licenciamiento y, en organismos metazoos, la acción de Geminin sobre CDT1. La existencia de varios mecanismos redundantes refleja la importancia biológica de impedir la rereplicación.
Esta regulación explica por qué no debe interpretarse la fase S como una etapa en la que la célula simplemente “copia su DNA”. Se trata de un proceso altamente organizado en el espacio y en el tiempo. Los diferentes orígenes no necesariamente se activan todos simultáneamente. Existe un programa temporal de replicación en el que distintas regiones cromosómicas se replican en diferentes momentos de S. Algunas regiones de cromatina relativamente accesible tienden a replicarse de manera temprana, mientras que regiones con determinadas características estructurales y epigenéticas pueden replicarse posteriormente. Esta organización permite coordinar la duplicación del genoma con la arquitectura tridimensional de la cromatina y con otros procesos nucleares.
Además, la célula posee más orígenes licenciados durante G1 de los que necesita activar obligatoriamente para completar la replicación en condiciones normales. Una fracción de estos orígenes permanece normalmente inactiva y recibe el nombre de orígenes durmientes. Su existencia proporciona una reserva funcional: si una horquilla de replicación se detiene debido a daño en el DNA, estructuras difíciles de replicar o limitaciones en la disponibilidad de componentes replicativos, algunos orígenes cercanos pueden activarse y contribuir a completar la duplicación de la región afectada. Por tanto, el exceso de orígenes licenciados no constituye una redundancia innecesaria, sino una estrategia de seguridad que aumenta la robustez de la replicación y disminuye el riesgo de que regiones del genoma permanezcan sin copiar.
El resultado global de la fase S es, por tanto, la duplicación completa del contenido de DNA nuclear, pero no la separación física de las copias. Al finalizar S, cada cromosoma ha sido replicado y está constituido por dos cromátidas hermanas genéticamente equivalentes, unidas principalmente mediante complejos de cohesina. La separación de esas cromátidas no ocurre durante S, sino posteriormente, durante la mitosis. La función de la fase S es generar las dos copias de cada molécula cromosómica; la función de la mitosis será distribuir esas copias entre las dos células hijas. Esta división funcional entre replicación y segregación constituye una característica central del ciclo celular eucariota.
Durante la fase G1, una célula diploide posee 2n cromosomas y un contenido de DNA de 2C. Durante esta fase se preparan los orígenes de replicación mediante el ensamblaje de complejos de pre-replicación, proceso que permite que las regiones cromosómicas queden preparadas para ser duplicadas. Al producirse la transición de G1 a S, los orígenes previamente licenciados son activados de manera regulada y se establecen horquillas de replicación bidireccionales. Durante la fase S se sintetiza una nueva cadena de DNA complementaria para cada cadena parental, mediante un proceso semiconservativo, hasta generar dos copias de cada molécula cromosómica. Como consecuencia, al finalizar S el número de cromosomas continúa siendo 2n, pero cada cromosoma está constituido por dos cromátidas hermanas y el contenido de DNA aumenta de 2C a 4C. La replicación está estrictamente regulada para asegurar que cada región del genoma sea duplicada una sola vez por ciclo celular, evitando tanto la pérdida de información por replicación incompleta como la inestabilidad genómica asociada con la rereplicación.

FUENTE Y BIBLIOGRAFÍA RECOMENDADA:
- Blow, J. J., & Dutta, A. (2005). Preventing re-replication of chromosomal DNA. Nature Reviews Molecular Cell Biology, 6(6), 476–486. https://doi.org/10.1038/nrm1663
- Fragkos, M., Ganier, O., Coulombe, P., & Méchali, M. (2015). DNA replication origin activation in space and time. Nature Reviews Molecular Cell Biology, 16(6), 360–374. https://doi.org/10.1038/nrm4002
- Li, C. (2010). DNA replication licensing control and rereplication prevention. Protein & Cell, 1(3), 227–236. https://doi.org/10.1007/s13238-010-0032-z
- Sclafani, R. A., & Holzen, T. M. (2007). Cell cycle regulation of DNA replication. Annual Review of Genetics, 41, 237–280. https://doi.org/10.1146/annurev.genet.41.110306.130308
- Stillman, B. (2005). Origin recognition and the chromosome cycle. FEBS Letters, 579(4), 877–884. https://doi.org/10.1016/j.febslet.2004.12.011
- Symeonidou, I. E., Kotsantis, P., Roukos, V., Rapsomaniki, M. A., & Taraviras, S. (2013). Control of replication licensing origins during the cell cycle. Cell Cycle, 12(2), 220–228. https://doi.org/10.4161/cc.23144
- Zhai, Y., & Méchali, M. (2019). Preparation for DNA replication: The key to a successful S phase. Cell Cycle, 18(19), 2594–2614. https://doi.org/10.1080/15384101.2019.1654303