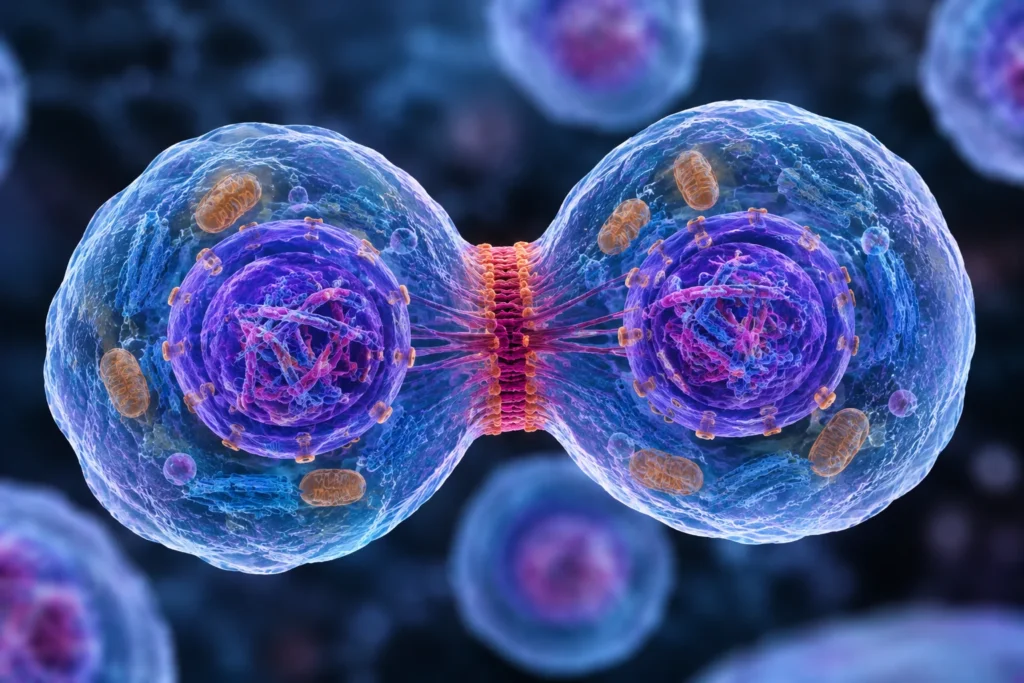

La telofase es la etapa final de la mitosis en la que los cromosomas, después de haberse separado durante la anafase y desplazado hacia polos opuestos de la célula, comienzan a recuperar una organización característica de la interfase. Durante esta fase se reorganiza la envoltura nuclear alrededor de cada conjunto de cromosomas, se restablece progresivamente la compartimentación del material genético y se inicia o continúa la recuperación de la actividad nuclear propia de las células que no se encuentran en división. Al mismo tiempo, la célula completa la distribución de sus componentes y coordina la separación del citoplasma mediante la citocinesis, proceso que permite formar dos células hijas físicamente independientes. Estos acontecimientos están estrechamente regulados, pues la formación de los nuevos núcleos y la separación celular deben coordinarse para conservar la integridad del material genético y la organización de las células resultantes.
La descondensación cromosómica constituye uno de los cambios más característicos de la telofase. Durante la mitosis, el ácido desoxirribonucleico se organiza en cromosomas altamente compactados, una configuración que facilita su movimiento y distribución mediante el huso mitótico. Una vez que los cromosomas hijos han alcanzado polos opuestos, esta compactación deja de ser necesaria en el mismo grado y la cromatina comienza a reorganizarse hacia una estructura menos condensada. Este cambio no implica que el material genético pierda su organización, sino que adopta una configuración compatible con las funciones nucleares que se reanudan durante la interfase, entre ellas la regulación de la expresión génica, la replicación del ácido desoxirribonucleico en el ciclo celular posterior y el mantenimiento de la arquitectura del núcleo. La descondensación es progresiva y está asociada con modificaciones de las interacciones entre el ácido desoxirribonucleico, las histonas y otras proteínas cromosómicas, así como con la recuperación de condiciones bioquímicas que favorecen la organización de la cromatina interfásica.
La formación de la envoltura nuclear alrededor de los cromosomas hijos es otro acontecimiento fundamental de la telofase. Durante las primeras etapas de la mitosis abierta, como ocurre en las células de muchos animales, la envoltura nuclear se desorganiza, lo que permite que los microtúbulos del huso mitótico accedan a los cromosomas. Al finalizar la segregación cromosómica, los componentes de la envoltura nuclear vuelven a ensamblarse alrededor de cada conjunto de cromosomas. Este proceso comprende la reorganización de las membranas nucleares, la incorporación de proteínas de la lámina nuclear y el restablecimiento de los complejos de poros nucleares, que regulan el transporte selectivo de moléculas entre el núcleo y el citoplasma. La reconstrucción de esta envoltura no es un simple cierre de membrana: requiere la coordinación de componentes estructurales y mecanismos de ensamblaje para establecer dos compartimentos nucleares funcionales. La secuencia y los detalles de este proceso varían según el organismo y el tipo de división celular; además, algunas células presentan formas de mitosis en las que la envoltura nuclear no se desorganiza por completo.
La recuperación del aspecto de interfase implica también el restablecimiento gradual de la organización funcional del núcleo. A medida que se reconstruye la envoltura nuclear, se incorporan complejos de poros nucleares que permiten regular el intercambio de proteínas, ácido ribonucleico y otras moléculas entre el núcleo y el citoplasma. Paralelamente, la cromatina recupera una distribución menos compacta y se reorganizan las condiciones moleculares que posibilitan la actividad de los genes. Estos cambios requieren la regulación de proteínas mediante modificaciones químicas reversibles, especialmente la fosforilación y desfosforilación, que contribuyen a coordinar la salida de la mitosis y la reconstrucción nuclear. Por tanto, los dos núcleos hijos no adquieren instantáneamente todas las características de un núcleo interfásico: su recuperación es progresiva y depende de la reorganización coordinada de las membranas, los poros nucleares y la cromatina.
La citocinesis es el proceso mediante el cual se divide físicamente el citoplasma de la célula progenitora para completar la formación de las dos células hijas. Aunque se estudia habitualmente junto con la telofase, constituye un proceso diferenciado de la división del núcleo, denominado cariocinesis. Ambos procesos están estrechamente coordinados, pero no son equivalentes: la mitosis distribuye los cromosomas en dos conjuntos, mientras que la citocinesis separa el contenido celular y establece la individualidad física de las células resultantes. En muchas células animales, la citocinesis comienza durante la anafase, antes de que la telofase haya concluido, y continúa hasta que se completa la separación física. Por ello, es más preciso afirmar que la citocinesis suele iniciarse antes de la telofase y culmina durante la fase final de la división celular, en lugar de considerarla un acontecimiento que necesariamente comienza después de esta etapa.
En las células animales, la citocinesis depende principalmente de la formación de un anillo contráctil compuesto por filamentos de actina, miosina II y proteínas reguladoras. Este anillo se organiza en la región ecuatorial de la corteza celular, aproximadamente entre los dos conjuntos de cromosomas segregados. Su ensamblaje está regulado por señales procedentes del huso mitótico, que contribuyen a determinar dónde debe formarse el surco de división. La pequeña proteína GTPasa RhoA desempeña una función importante en este mecanismo, ya que favorece la organización del citoesqueleto contráctil y la actividad de proteínas que generan fuerza. Cuando el anillo se contrae, la membrana plasmática se invagina y forma el surco de segmentación, que progresa hacia el interior de la célula hasta reducir la conexión entre las dos regiones que darán origen a las células hijas. La fuerza mecánica generada por la interacción entre actina y miosina permite estrechar progresivamente esta región, mientras que el citoesqueleto y los sistemas de membranas contribuyen a mantener la integridad estructural durante la separación.
La fase final de la citocinesis, denominada abscisión, consiste en la separación definitiva de las dos células hijas mediante la resolución de la conexión intercelular residual. Antes de este acontecimiento, las células pueden permanecer unidas por un puente citoplasmático estrecho que contiene estructuras derivadas del huso mitótico, entre ellas el cuerpo medio. La abscisión requiere una reorganización controlada del citoesqueleto y la participación de complejos proteicos que remodelan y escinden las membranas. En las células animales, el complejo de clasificación endosomal requerido para el transporte, conocido como ESCRT, participa en la organización de la maquinaria que facilita la separación final de las membranas. Esta etapa debe completarse de forma coordinada para evitar que las células hijas permanezcan conectadas o sufran daños en sus membranas. La citocinesis, por tanto, no termina simplemente cuando el surco de segmentación se hace visible, sino cuando se establece la separación física efectiva de las células resultantes.
En las células vegetales, el mecanismo de citocinesis presenta diferencias importantes debido a la presencia de una pared celular rígida. En lugar de depender de un surco de segmentación que se profundiza desde la periferia hacia el centro, estas células forman una placa celular a partir de vesículas y otros componentes de membrana que se organizan en la región central. La placa crece hacia la periferia y se fusiona con la membrana plasmática preexistente, contribuyendo a establecer las membranas de las dos células hijas y la nueva pared que las separa. Esta diferencia demuestra que la citocinesis no sigue un mecanismo universal idéntico en todas las células eucariotas, aunque su objetivo general sea dividir el citoplasma y distribuir los componentes celulares entre las células descendientes. En consecuencia, la descripción del anillo contráctil y del surco de segmentación corresponde principalmente a la citocinesis animal y no debe generalizarse sin matices a las células vegetales.
La coordinación entre la telofase y la citocinesis es indispensable para asegurar que las células hijas reciban sus conjuntos cromosómicos y establezcan compartimentos celulares funcionales. Si la reconstrucción nuclear se altera, pueden formarse núcleos con una arquitectura anormal o estructuras nucleares adicionales, como los micronúcleos, que pueden surgir cuando determinados cromosomas o fragmentos cromosómicos quedan fuera de los núcleos principales. Si la citocinesis falla, la célula puede conservar dos núcleos en un mismo citoplasma o adquirir un contenido cromosómico anormal, dependiendo de las circunstancias del fallo y de los mecanismos celulares posteriores. Estas alteraciones pueden comprometer la estabilidad genómica y se han relacionado con procesos patológicos, incluidos determinados mecanismos asociados con el desarrollo tumoral. La correcta finalización de la división celular requiere, por consiguiente, tanto la reconstrucción de los núcleos hijos como la separación física de las células.
La telofase se caracteriza por la descondensación progresiva de los cromosomas, la reconstrucción de la envoltura nuclear y la recuperación gradual de la organización funcional propia de la interfase. La citocinesis, estrechamente coordinada con estos acontecimientos, completa la división física del citoplasma mediante mecanismos que varían entre las células animales y vegetales. La importancia biológica de ambos procesos radica en que la distribución del material genético debe acompañarse de la formación de compartimentos nucleares funcionales y de células físicamente separadas. De esta manera, la mitosis y la citocinesis completan la división celular y permiten que las células hijas continúen sus funciones biológicas con una organización nuclear y citoplasmática apropiada.

FUENTE Y BIBLIOGRAFÍA RECOMENDADA:
- Archambault, V., Li, S., Emond-Fraser, S., & Larouche, M. (2022). Dephosphorylation in nuclear reassembly after mitosis. Cells, 11(20), Article 3231. https://doi.org/10.3390/cells11203231
- Fededa, J. P., & Gerlich, D. W. (2012). Molecular control of animal cell cytokinesis. Nature Cell Biology, 14, 440–447. https://doi.org/10.1038/ncb2482
- Green, R. A., Paluch, E., & Oegema, K. (2012). Cytokinesis in animal cells. Annual Review of Cell and Developmental Biology, 28, 29–58. https://doi.org/10.1146/annurev-cellbio-101011-155718
- Schooley, A., Vollmer, B., & Antonin, W. (2012). Building a nuclear envelope at the end of mitosis: Coordinating membrane reorganization, nuclear pore complex assembly, and chromatin de-condensation. Chromosoma, 121(6), 539–554. https://doi.org/10.1007/s00412-012-0388-3
- Schellhaus, A. K., De Magistris, P., & Antonin, W. (2016). Nuclear reformation at the end of mitosis. Journal of Molecular Biology, 428(10), 1962–1985. https://doi.org/10.1016/j.jmb.2015.09.016
- Verma, V., Mogilner, A., & Maresca, T. J. (2019). Classical and emerging regulatory mechanisms of cytokinesis in animal cells. Biology, 8(3), Article 55. https://doi.org/10.3390/biology8030055