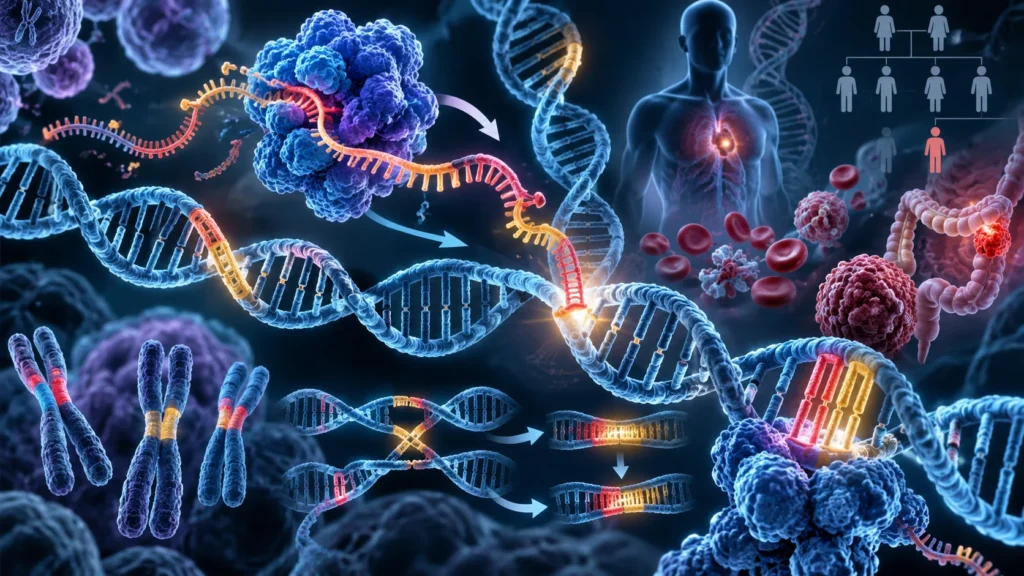

El DNA repetitivo constituye una fracción extraordinariamente importante del genoma humano y, lejos de representar únicamente material genético inerte, participa activamente en la generación de variación estructural, regulación de la expresión génica y mutagénesis. Entre sus componentes destacan los elementos Alu, pertenecientes a los elementos cortos intercalados, y los elementos LINE, especialmente LINE-1, que constituyen los principales retrotransposones autónomos todavía capaces de movilizarse en el genoma humano. Esta capacidad de desplazamiento explica por qué determinadas secuencias repetitivas pueden convertirse en agentes mutagénicos y originar enfermedades hereditarias cuando sus movimientos o recombinaciones alteran genes funcionalmente esenciales.
Los elementos Alu son secuencias repetitivas de aproximadamente 300 pares de bases que se encuentran en más de un millón de copias en el genoma humano. Son elementos no autónomos porque carecen de la maquinaria proteica necesaria para realizar por sí mismos su retrotransposición; utilizan principalmente las proteínas codificadas por LINE-1. Esta dependencia establece una relación funcional particularmente importante entre ambos tipos de DNA repetitivo: LINE-1 proporciona la maquinaria molecular que permite que tanto sus propias secuencias como elementos no autónomos, entre ellos Alu, puedan copiarse mediante un intermediario de RNA e insertarse posteriormente en nuevas localizaciones cromosómicas.
La retrotransposición de LINE-1 comienza con la transcripción de una copia de LINE-1 en RNA. El RNA es posteriormente traducido y las proteínas resultantes se asocian preferentemente con el propio RNA que las produjo. La endonucleasa de LINE-1 realiza un corte en el DNA cromosómico diana y la transcriptasa inversa utiliza el RNA como molde para generar una nueva copia de DNA directamente en el sitio de integración. Este proceso se denomina retrotransposición y tiene una característica fundamental para comprender su potencial patogénico: la nueva copia no reemplaza a la original, sino que se añade a ella. Por tanto, cada acontecimiento exitoso de retrotransposición puede incrementar el número de copias y modificar la arquitectura del genoma.
La mayoría de las copias de LINE-1 presentes en el genoma humano están inactivadas por mutaciones acumuladas; sin embargo, se estima que aproximadamente entre 80 y 100 copias por individuo conservan potencial de retrotransposición. Esta actividad residual es suficiente para generar nuevas inserciones germinales y somáticas. Cuando una inserción ocurre en una célula de la línea germinal o en una célula precursora de los gametos, puede transmitirse a la descendencia y convertirse en una mutación hereditaria. Cuando sucede después de la fecundación, puede producir mosaicismo, de modo que solamente una fracción de las células del individuo contiene la nueva inserción.
Cómo una secuencia repetitiva produce una mutación patogénica
Una inserción de Alu o LINE-1 puede producir enfermedad mediante varios mecanismos molecularmente diferentes. El mecanismo más directo consiste en la inserción dentro de la región codificante de un gen. Si la nueva secuencia se introduce dentro de un exón, puede modificar el marco de lectura, introducir codones de terminación prematuros o alterar directamente la secuencia de aminoácidos de la proteína. Si se introduce en un intrón, puede interferir con el procesamiento normal del RNA mensajero, especialmente cuando introduce señales crípticas de corte y empalme, modifica señales de poliadenilación o favorece la exclusión de exones. También puede insertarse cerca de un gen y modificar su regulación transcripcional. Estos mecanismos explican por qué una mutación causada por DNA repetitivo no necesariamente requiere que la secuencia repetitiva se encuentre dentro de una región codificante para producir una enfermedad.
Un ejemplo particularmente demostrativo es el de la hemofilia B. Se identificó en un paciente con enfermedad grave una inserción de un elemento Alu perteneciente a una subfamilia específica de primates dentro del exón V del gen que codifica el factor IX. La inserción interrumpió el marco de lectura del gen y produjo un codón de terminación prematuro dentro de la propia secuencia insertada. Como consecuencia, el producto génico normal no podía sintetizarse adecuadamente. Este caso constituye una demostración directa de que una nueva inserción de Alu puede actuar como mutación causante de una enfermedad hereditaria.
Los elementos Alu también pueden producir enfermedad cuando se insertan en regiones intrónicas. En la hemofilia A se documentó una inserción de un elemento Alu Yb9 dentro de un intrón del gen que codifica el factor VIII. Aunque la secuencia repetitiva no se encontraba dentro de un exón, la inserción alteró el procesamiento del RNA y provocó la exclusión de un exón. El resultado fue una alteración grave de la expresión del gen. Este ejemplo es importante porque demuestra que el efecto mutagénico de DNA repetitivo depende de la organización funcional del gen completo y no exclusivamente de la región que codifica la proteína.
Un fenómeno semejante se ha observado en el gen NF1. El análisis molecular de pacientes con alteraciones de corte y empalme que no podían explicarse inicialmente mediante mutaciones puntuales o deleciones convencionales permitió identificar inserciones de elementos Alu y LINE-1. En una serie de pacientes se encontraron 14 inserciones de Alu y 3 inserciones de LINE-1 responsables de alteraciones del procesamiento del RNA. Esto demuestra que la retrotransposición puede generar enfermedad no solamente mediante destrucción física de una región codificante, sino también mediante perturbación de la arquitectura necesaria para producir correctamente un RNA mensajero funcional.
Alu y recombinación homóloga no alélica
Existe además un segundo mecanismo fundamental mediante el cual los elementos Alu generan enfermedad: la recombinación entre copias repetidas localizadas en diferentes posiciones del genoma. Debido a que existen cientos de miles de secuencias Alu con un grado considerable de homología, dos copias diferentes pueden reconocerse erróneamente como regiones equivalentes durante la recombinación. Si se encuentran en la misma orientación, un intercambio desigual puede eliminar el segmento de DNA situado entre ellas. Si se encuentran en orientaciones opuestas, pueden favorecer otros tipos de reorganización cromosómica, incluyendo deleciones, inversiones y, en determinadas circunstancias, duplicaciones.
Este fenómeno se ha demostrado de manera clásica en la hipercolesterolemia familiar. En un paciente se identificó una deleción de aproximadamente 5 kilobases en el gen del receptor de lipoproteínas de baja densidad. La deleción eliminaba los exones responsables de codificar regiones transmembrana y citoplasmáticas esenciales del receptor y se determinó que había surgido mediante recombinación entre dos secuencias Alu orientadas en direcciones opuestas. La proteína resultante carecía de las regiones necesarias para permanecer y funcionar correctamente en la membrana celular, proporcionando una relación molecular directa entre la recombinación mediada por DNA repetitivo y el fenotipo de enfermedad.
También se han identificado deleciones patogénicas del gen del receptor de lipoproteínas de baja densidad originadas por recombinación entre secuencias Alu orientadas en la misma dirección. En uno de estos casos, la deleción eliminó los exones 13 y 14 y alteró el marco de lectura del RNA mensajero. El producto proteico resultante era anormal y no podía desempeñar adecuadamente su función. Estos hallazgos demostraron que la abundancia de Alu crea regiones genómicamente susceptibles a recombinación desigual y que esta susceptibilidad puede traducirse directamente en enfermedades hereditarias.
La importancia de este mecanismo también se observa en genes relacionados con predisposición hereditaria al cáncer. En familias finlandesas con cáncer colorrectal hereditario se identificó una deleción de aproximadamente 3.5 kilobases en el gen MLH1 que probablemente se originó por recombinación mediada por Alu. La mutación afectaba una región del gen necesaria para su funcionamiento y se convirtió en una mutación fundadora que explicaba una proporción importante de las familias estudiadas. Este ejemplo muestra que los elementos repetitivos pueden producir no solamente enfermedades monogénicas clásicas, sino también mutaciones germinales que incrementan de manera hereditaria la predisposición a neoplasias.
Un fenómeno comparable se ha descrito en el gen APC. En una familia con enfermedad desmoide hereditaria se identificó una inserción de 337 pares de bases correspondiente a una secuencia Alu dentro del gen APC. La inserción produjo una mutación que truncaba la proteína y presentaba una cola de poliadenina compatible con un origen por retrotransposición. El hallazgo proporcionó evidencia molecular de que una nueva copia de Alu podía incorporarse directamente al genoma germinal y generar una mutación hereditaria con consecuencias fenotípicas.
Las secuencias Alu también han sido implicadas en genes BRCA. Se identificaron inserciones de novo de elementos Alu dentro de regiones codificantes de BRCA1 y BRCA2 en familias con predisposición hereditaria al cáncer de mama y ovario. Estos hallazgos tienen una consecuencia práctica importante: determinados métodos diagnósticos basados principalmente en amplificación mediante reacción en cadena de la polimerasa pueden no detectar adecuadamente inserciones repetitivas de gran tamaño. Por ello, las variantes estructurales derivadas de elementos repetitivos pueden quedar infradiagnosticadas cuando el análisis genético se limita a sustituciones de nucleótidos, pequeñas inserciones y pequeñas deleciones.
LINE-1 como fuente directa de mutaciones hereditarias
A diferencia de Alu, LINE-1 posee la maquinaria necesaria para movilizarse de manera autónoma. Esta propiedad permite que LINE-1 sea simultáneamente una secuencia repetitiva y una fuente directa de mutaciones por retrotransposición. El genoma humano contiene aproximadamente 17% de secuencias derivadas de LINE-1, aunque la gran mayoría corresponde a copias inactivas. Las copias competentes conservan una región que codifica una endonucleasa y una transcriptasa inversa, enzimas indispensables para su movilización.
La primera demostración clásica de que LINE-1 podía producir una enfermedad hereditaria se obtuvo en pacientes con hemofilia A. Se identificaron inserciones de secuencias LINE-1 dentro del exón 14 del gen que codifica el factor VIII. Las inserciones tenían tamaños aproximados de 3.8 y 2.3 kilobases y contenían regiones terminales de LINE-1, incluida una cola de poliadenina. Además, presentaban duplicaciones del sitio diana, características moleculares que apoyan un mecanismo de retrotransposición. La inserción dentro del gen interrumpió su estructura normal y proporcionó una explicación molecular para la enfermedad.
Los estudios sistemáticos posteriores identificaron múltiples mutaciones humanas producidas mediante mecanismos dependientes de LINE-1. En un análisis de 48 mutaciones relacionadas con enfermedad genética humana se identificaron 15 inserciones directas de LINE-1, 26 inserciones de Alu movilizadas por la maquinaria de LINE-1, 4 inserciones de elementos SVA y 3 acontecimientos asociados con inserciones de secuencias de poliadenina. Esta distribución es especialmente importante porque demuestra que el efecto mutagénico de LINE-1 no se limita a sus propias inserciones: LINE-1 funciona como un sistema molecular que moviliza también otros retrotransposones no autónomos.
Una característica adicional de estas inserciones es que pueden producir alteraciones estructurales mucho más complejas que una simple incorporación de DNA. Aproximadamente una cuarta parte de las nuevas inserciones de LINE-1 analizadas en estudios sistemáticos presentaban transducción de secuencias situadas inmediatamente después del elemento LINE-1 original. Esto significa que durante la retrotransposición pueden movilizarse fragmentos del DNA genómico que flanqueaban al elemento original. En consecuencia, una sola retrotransposición puede trasladar simultáneamente LINE-1 y segmentos adicionales de DNA a otra región cromosómica.
La retrotransposición de LINE-1 también puede producir deleciones en el sitio de inserción. Los análisis de acontecimientos mutagénicos humanos han indicado que una proporción de las inserciones mediadas por LINE-1 se asocia con pérdidas considerables de DNA. Por tanto, el efecto final de LINE-1 puede consistir en una combinación de inserción y deleción, lo que convierte a estos elementos en generadores de variantes estructurales complejas y no simplemente en secuencias que se añaden al genoma.
Por qué las secuencias repetitivas son especialmente mutagénicas
La elevada capacidad mutagénica de Alu y LINE-1 deriva de varias propiedades que se potencian entre sí. En primer lugar, su abundancia aumenta la probabilidad de que una nueva inserción afecte accidentalmente un gen. En segundo lugar, la homología entre numerosas copias de elementos repetitivos proporciona múltiples sustratos para recombinación incorrecta. En tercer lugar, los retrotransposones pueden alterar el procesamiento del RNA mediante la introducción de señales de corte y empalme, señales de poliadenilación o regiones reguladoras. En cuarto lugar, la actividad de LINE-1 puede modificar la estructura cromosómica mediante inserciones, deleciones y transducciones.
La relación entre abundancia y mutagénesis es particularmente evidente en Alu. La existencia de más de un millón de copias proporciona una enorme cantidad de secuencias homólogas distribuidas por todo el genoma. Esta arquitectura incrementa las posibilidades de recombinación ectópica, es decir, de recombinación entre regiones que presentan homología pero que no deberían recombinarse entre sí. El resultado puede ser la pérdida de exones completos, duplicación de segmentos, alteración de marcos de lectura o modificación de regiones reguladoras.
Por su parte, LINE-1 añade una propiedad que Alu no posee por sí mismo: autonomía retrotransposicional. Una copia de LINE-1 puede generar un RNA, producir las proteínas necesarias para su movilización y promover la inserción de una nueva copia en otro lugar del genoma. Esta actividad explica por qué LINE-1 constituye una fuente continua de variación estructural. Cuando el proceso ocurre en la línea germinal y la nueva inserción altera un gen esencial, la variante puede transmitirse entre generaciones siguiendo los patrones de herencia correspondientes al gen afectado.
Es importante distinguir, sin embargo, entre una inserción somática y una inserción germinal. Una inserción somática queda restringida a la descendencia celular de la célula en la que se produjo y puede contribuir al mosaicismo. Una inserción germinal puede estar presente desde el inicio del desarrollo embrionario y transmitirse a la descendencia. Por esta razón, no toda actividad de LINE-1 implica una enfermedad hereditaria: para que una mutación retrotransposicional sea heredable, debe producirse en la línea germinal o encontrarse ya presente en una célula germinal que contribuya a la formación del individuo.
Consecuencia biológica general
Por tanto, la afirmación de que las secuencias Alu y LINE pueden ser causa de mutaciones en enfermedades hereditarias debe entenderse en un sentido molecular amplio. Estas secuencias pueden producir enfermedad mediante inserción directa, recombinación entre copias repetitivas, deleciones asociadas con retrotransposición, transducción de DNA flanqueante, alteración del corte y empalme, interferencia con la transcripción y modificación de la arquitectura cromosómica. La enfermedad aparece cuando alguno de estos acontecimientos modifica suficientemente la cantidad, estructura, localización o regulación del producto de un gen esencial.
En conjunto, los ejemplos de hemofilia A, hemofilia B, hipercolesterolemia familiar, predisposición hereditaria al cáncer colorrectal, enfermedad desmoide hereditaria, alteraciones de NF1 y predisposición hereditaria asociada con BRCA1 y BRCA2 demuestran que esta relación no es meramente hipotética. Existen casos humanos en los que se ha identificado la secuencia repetitiva, se ha determinado su posición en el genoma, se ha establecido el mecanismo molecular de la mutación y se ha relacionado dicho cambio con el fenotipo patológico.
Así, el DNA repetitivo debe considerarse una fuente dinámica de inestabilidad genética. Su importancia patológica deriva precisamente de una paradoja evolutiva: las mismas propiedades que permiten a estos elementos expandirse y contribuir a la diversidad y evolución del genoma también generan oportunidades para producir mutaciones perjudiciales. LINE-1 proporciona la maquinaria de movilización y Alu utiliza esa maquinaria; simultáneamente, la enorme abundancia y homología de Alu favorecen recombinaciones ectópicas. De esta manera, los elementos repetitivos no son simples regiones pasivas del genoma, sino componentes capaces de modificar activamente su estructura y, en determinadas circunstancias, producir enfermedades hereditarias.

FUENTE Y BIBLIOGRAFÍA RECOMENDADA:
- Beck, C. R., Garcia-Perez, J. L., Badge, R. M., & Moran, J. V. (2011). LINE-1 elements in structural variation and disease. Annual Review of Genomics and Human Genetics, 12, 187–215. https://doi.org/10.1146/annurev-genom-082509-141802
- Chen, J.-M., Stenson, P. D., Cooper, D. N., & Férec, C. (2005). A systematic analysis of LINE-1 endonuclease-dependent retrotranspositional events causing human genetic disease. Human Genetics, 117(5), 411–427. https://doi.org/10.1007/s00439-005-1321-0
- Deininger, P. L., & Batzer, M. A. (1999). Alu repeats and human disease. Molecular Genetics and Metabolism, 67(3), 183–193. https://doi.org/10.1006/mgme.1999.2864
- Fay, P. J., & Jenkins, P. V. (2005). Mutating factor VIII: Lessons from structure to function. Blood Reviews, 19(1), 15–27. https://doi.org/10.1016/j.blre.2004.02.003
- Lehrman, M. A., Schneider, W. J., Südhof, T. C., Brown, M. S., Goldstein, J. L., & Russell, D. W. (1985). Mutation in LDL receptor: Alu-Alu recombination deletes exons encoding transmembrane and cytoplasmic domains. Science, 227(4689), 140–146. https://doi.org/10.1126/science.3155573
- Luqman-Fatah, A., & Miyoshi, T. (2023). Human LINE-1 retrotransposons: Impacts on the genome and regulation by host factors. Genes & Genetic Systems, 98(3), 121–154. https://doi.org/10.1266/ggs.22-00038
- Suarez, N. A., Macia, A., & Muotri, A. R. (2018). LINE-1 retrotransposons in healthy and diseased human brain. Developmental Neurobiology, 78(5), 434–455. https://doi.org/10.1002/dneu.22567
- Thomas, C. A., Paquola, A. C. M., & Muotri, A. R. (2012). LINE-1 retrotransposition in the nervous system. Annual Review of Cell and Developmental Biology, 28, 555–573. https://doi.org/10.1146/annurev-cellbio-101011-155822
- Vidaud, D., Vidaud, M., Bahnak, B. R., Siguret, V., Gispert Sanchez, G., Laurian, Y., Meyer, D., Goossens, M., & Lavergne, J. M. (1993). Haemophilia B due to a de novo insertion of a human-specific Alu subfamily member within the coding region of the factor IX gene. European Journal of Human Genetics, 1(1), 30–36. https://doi.org/10.1159/000472385