
Durante la fase mitótica del ciclo celular, la segregación cromosómica constituye uno de los procesos fundamentales para conservar la estabilidad genética de las células y garantizar que la información hereditaria se transmita de manera equilibrada a las células hijas. Su importancia radica en que el material genético contiene las instrucciones necesarias para regular la expresión génica, la síntesis de proteínas, el metabolismo, la proliferación y el mantenimiento de las funciones celulares. Por esta razón, la división de una célula no consiste simplemente en separar su contenido en dos partes, sino en organizar, duplicar y distribuir los cromosomas previamente replicados, de manera que cada célula hija reciba una dotación cromosómica apropiada para su especie y para el tipo celular del que procede. La mitosis es, por tanto, un proceso de distribución ordenada del material genético cuya ejecución depende de la coordinación entre la estructura de los cromosomas, los mecanismos de unión al citoesqueleto, los sistemas de vigilancia del ciclo celular y la maquinaria molecular que genera las fuerzas necesarias para separar los cromosomas. La alteración de cualquiera de estos componentes puede provocar errores de segregación, cambios en el número de cromosomas y consecuencias importantes para la viabilidad, la función y la evolución de las células.
La explicación de este mecanismo comienza antes de la mitosis propiamente dicha, durante la fase de síntesis del ciclo celular, en la que se duplica el ácido desoxirribonucleico. Cada cromosoma que inicialmente contiene una molécula de ácido desoxirribonucleico organizada en una cromátida pasa a estar constituido por dos cromátidas hermanas, cada una con una copia de esa molécula. Aunque ambas cromátidas contienen, en condiciones normales, secuencias genéticas prácticamente idénticas, no se consideran dos cromosomas independientes durante esta etapa, porque permanecen físicamente asociadas mediante complejos proteicos y otras interacciones que contribuyen a mantener su cohesión. Esta asociación es indispensable: si las cromátidas hermanas se separaran prematuramente, la célula perdería el control sobre su distribución y aumentaría la probabilidad de que una célula hija recibiera copias adicionales de determinados cromosomas mientras la otra quedara privada de ellas. La duplicación del ácido desoxirribonucleico y la conservación temporal de la unión entre las cromátidas permiten que la célula prepare dos copias del genoma antes de repartirlas, en lugar de intentar duplicar y distribuir simultáneamente la información genética durante la división. La replicación y la cohesión de las cromátidas son, en consecuencia, requisitos complementarios para que la segregación cromosómica ocurra correctamente.
Es importante distinguir entre cromosoma, cromátida y cromátidas hermanas, porque estos conceptos describen estados estructurales diferentes del material genético y permiten comprender por qué la afirmación de que cada célula hija recibe una cromátida de cada cromosoma es correcta en términos generales, aunque requiere una precisión conceptual. Antes de la replicación, cada cromosoma está constituido por una cromátida; después de la replicación, está formado por dos cromátidas hermanas asociadas. Durante la mitosis, ambas cromátidas se separan y cada una pasa a constituir un cromosoma independiente en la célula hija correspondiente. Por tanto, no se distribuye una cromátida de cada cromosoma sin duplicar, sino una de las dos cromátidas hermanas generadas previamente durante la fase de síntesis. Esta diferencia es esencial para entender la conservación del número cromosómico: la duplicación incrementa la cantidad de ácido desoxirribonucleico, pero no duplica de manera permanente el número de juegos cromosómicos de la célula. La separación posterior de las cromátidas hermanas permite que cada célula hija reciba nuevamente una copia de cada cromosoma presente en la dotación original de la célula madre, siempre que no ocurran errores durante la replicación o la segregación.
La organización física de las cromátidas hermanas depende, en gran medida, del complejo proteico denominado cohesina, que contribuye a mantenerlas unidas desde la replicación del ácido desoxirribonucleico hasta el momento apropiado de la división. Este complejo está constituido por varias proteínas que forman una estructura molecular capaz de establecer y regular asociaciones con el material genético. Su función no se limita a mantener próximas las cromátidas: también contribuye a la organización de los cromosomas, participa en procesos de reparación del ácido desoxirribonucleico y ejerce funciones relacionadas con la regulación de la expresión genética. Durante la mitosis, la cohesión entre las cromátidas hermanas permite que las fuerzas ejercidas desde polos opuestos del huso mitótico se transmitan a través de una unidad cromosómica organizada. De esta manera, las dos copias permanecen asociadas mientras la célula establece las conexiones necesarias para separarlas de forma coordinada. La cohesina constituye, por tanto, un elemento estructural decisivo para que la duplicación del material genético se traduzca posteriormente en una distribución equilibrada, en lugar de producir una separación aleatoria de las copias cromosómicas.
La región cromosómica denominada centrómero desempeña una función esencial en esta organización. Se trata de una región especializada del cromosoma en la que se establece una estructura proteica conocida como cinetocoro. Aunque ambos términos se encuentran estrechamente relacionados, no son equivalentes: el centrómero corresponde a una región cromosómica definida por características estructurales y epigenéticas, mientras que el cinetocoro es un complejo molecular ensamblado sobre esa región. El cinetocoro funciona como punto de conexión entre el cromosoma y los microtúbulos del huso mitótico, además de participar en la generación de señales que regulan la progresión del ciclo celular. Esta conexión es indispensable porque los cromosomas no pueden desplazarse correctamente hacia los polos celulares si carecen de un sistema molecular capaz de acoplarlos a las estructuras que producen y transmiten las fuerzas de movimiento. El centrómero y el cinetocoro permiten, en consecuencia, transformar la organización interna del cromosoma en una conexión mecánica funcional con el aparato de segregación.
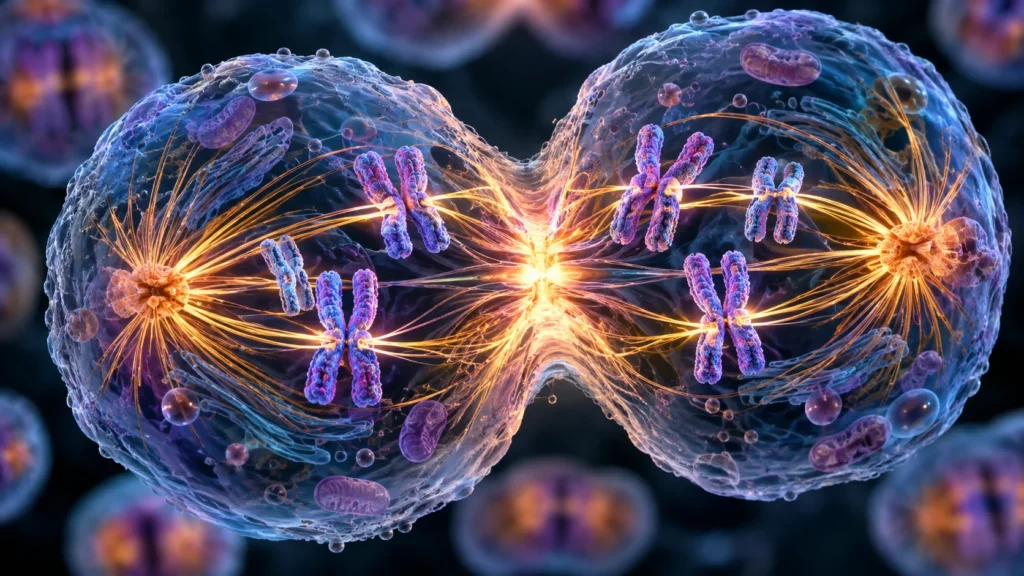
El aparato que lleva a cabo esta distribución es el huso mitótico, una estructura macromolecular dinámica formada principalmente por microtúbulos, proteínas asociadas a estos y proteínas motoras. Los microtúbulos son polímeros constituidos por tubulina que pueden crecer mediante la incorporación de subunidades y acortarse mediante su pérdida. Esta capacidad de reorganización constante, denominada inestabilidad dinámica, permite que el huso explore el espacio celular, establezca conexiones con los cinetocoros y modifique su arquitectura conforme progresa la mitosis. En muchas células animales, los centrosomas contribuyen a organizar los polos del huso, aunque existen mecanismos adicionales de formación y organización de microtúbulos que también pueden intervenir. Por ello, el huso mitótico no debe concebirse como una estructura rígida semejante a un soporte inmóvil, sino como una maquinaria molecular autorregulada que construye, modifica y mantiene conexiones mecánicas con los cromosomas. La combinación de polimerización, despolimerización, actividad de proteínas motoras y regulación de las interacciones entre microtúbulos permite posicionar los cromosomas y generar las fuerzas necesarias para su separación.
La formación del huso y la captura de los cromosomas ocurren mediante una secuencia de acontecimientos coordinados. Al comenzar la mitosis, los cromosomas se condensan y adquieren una estructura compacta que facilita su manipulación y separación. Simultáneamente, el aparato microtubular se reorganiza para establecer una disposición bipolar, con dos regiones que funcionarán como polos opuestos. Los microtúbulos establecen conexiones con los cinetocoros mediante un proceso de búsqueda y captura, aunque las rutas moleculares específicas varían según el tipo celular. Una vez que se produce la unión, estas conexiones pueden modificarse, estabilizarse o deshacerse en función de su orientación y de las fuerzas que soportan. La finalidad no consiste simplemente en unir cada cromosoma a cualquier microtúbulo disponible, sino en establecer una configuración que permita distribuir las dos cromátidas hermanas hacia polos contrarios. Esta organización constituye una condición mecánica previa a la separación cromosómica y explica por qué la formación del huso, la captura de los cinetocoros y la corrección de las uniones incorrectas deben estar estrechamente coordinadas.
En una configuración correcta, los cinetocoros de las dos cromátidas hermanas se orientan hacia polos opuestos del huso mitótico. Esta disposición se denomina biorientación. En ella, las cromátidas permanecen unidas por la cohesión, mientras cada una establece una conexión funcional con los microtúbulos asociados al polo que le corresponde. Las fuerzas que actúan desde ambos extremos generan tensión mecánica sobre la región que mantiene unidas a las cromátidas y contribuyen a estabilizar las uniones apropiadas. La tensión no constituye por sí sola una prueba infalible de que todas las conexiones sean correctas, pero interviene en los mecanismos celulares que distinguen configuraciones adecuadas de otras que requieren corrección. Si ambas cromátidas se conectan al mismo polo, si un cinetocoro permanece sin conexión o si una estructura cromosómica establece uniones inapropiadas, la distribución posterior puede resultar defectuosa. Por este motivo, la célula dispone de mecanismos de corrección que desestabilizan determinadas uniones incorrectas y permiten que los microtúbulos establezcan nuevas conexiones hasta favorecer una configuración compatible con la segregación precisa.
Cuando los cromosomas alcanzan una disposición adecuada, muchos de ellos se alinean en una región central del huso denominada placa metafásica. Esta alineación caracteriza la metafase y representa una manifestación visible de la organización cromosómica alcanzada, pero es importante señalar que la posición central de un cromosoma no demuestra, por sí sola, que todas sus conexiones sean correctas. La alineación debe interpretarse junto con la orientación de los cinetocoros, la integridad de las uniones con los microtúbulos y el funcionamiento de los sistemas de vigilancia mitótica. La metafase permite que los cromosomas permanezcan organizados en una configuración desde la que las cromátidas hermanas pueden separarse de manera coordinada. La disposición bipolar y la correcta conexión de los cinetocoros hacen posible que la transición hacia la siguiente etapa se produzca cuando las condiciones moleculares y mecánicas son suficientemente apropiadas.
La célula controla esta transición mediante el punto de control del ensamblaje del huso mitótico, un sistema de vigilancia molecular que impide que la separación de las cromátidas hermanas se inicie prematuramente. Este mecanismo detecta, principalmente, la presencia de cinetocoros que no han establecido las conexiones necesarias con los microtúbulos y genera una señal inhibitoria que retrasa la progresión hacia la anafase. Entre sus componentes se encuentran proteínas que se reúnen en los cinetocoros no unidos y contribuyen a formar un complejo inhibidor capaz de bloquear la actividad del complejo promotor de la anafase o ciclosoma, una maquinaria molecular que regula la transición mitótica mediante la ubiquitinación de proteínas específicas. Este sistema evita que la célula active el programa de separación cromosómica mientras persistan señales de conexiones incompletas. Su importancia es considerable porque la segregación no puede corregirse fácilmente una vez que las cromátidas hermanas han comenzado a desplazarse hacia polos opuestos. El punto de control proporciona, por tanto, una oportunidad para completar o corregir las conexiones antes de comprometer la distribución del material genético.
Debe precisarse que el punto de control del ensamblaje del huso no garantiza una segregación absolutamente libre de errores. Su capacidad de vigilancia depende de las señales moleculares que recibe, y una conexión incorrecta que no genere una señal inhibitoria suficiente puede permitir que la célula continúe hacia la anafase. Por ello, la fidelidad de la segregación surge de la cooperación entre varios mecanismos: la organización del centrómero y el cinetocoro, la captura y estabilización de los microtúbulos, la corrección de las uniones incorrectas, la cohesión de las cromátidas hermanas y el control de la progresión mitótica. Estos procesos se complementan, pero ninguno debe considerarse infalible por separado. La célula necesita integrar señales estructurales, mecánicas y bioquímicas para reducir la probabilidad de errores y mantener la integridad del genoma durante sucesivas divisiones.
Una vez que las condiciones necesarias para la transición se han alcanzado, se activa el mecanismo molecular que desencadena la separación de las cromátidas hermanas. El complejo promotor de la anafase o ciclosoma, conocido por sus siglas en inglés como APC/C, favorece la ubiquitinación de proteínas reguladoras y su posterior degradación por el proteasoma. Entre sus objetivos se encuentra la securina, una proteína que inhibe a la separasa, la enzima responsable de escindir una subunidad esencial de la cohesina. Cuando la securina se degrada, la separasa puede activarse y eliminar la cohesión que mantiene asociadas las cromátidas hermanas en las regiones donde esta unión debe desaparecer para permitir su separación. De manera coordinada, la degradación de la ciclina B contribuye a disminuir la actividad de la quinasa dependiente de ciclina 1 y permite que la célula abandone el estado molecular característico de la mitosis. La activación del complejo promotor de la anafase conecta, así, la vigilancia de las uniones cromosómicas con la ejecución efectiva de la segregación: primero se reduce la inhibición de la transición y después se activa un programa bioquímico que permite separar las copias cromosómicas.
La anafase es la etapa en la que la segregación cromosómica se hace especialmente evidente. Una vez eliminada la cohesión que mantiene unidas las cromátidas hermanas, estas se separan y comienzan a desplazarse hacia polos opuestos del huso mitótico. Desde el punto de vista estructural, cada cromátida separada pasa a considerarse un cromosoma independiente. Este cambio terminológico no significa que se haya creado nueva información genética en ese instante, sino que las dos copias previamente asociadas han dejado de formar una unidad de cromátidas hermanas y ahora se distribuyen como cromosomas individuales. La separación coordinada permite que una copia de cada cromosoma duplicado se dirija hacia cada polo celular. En condiciones normales, este proceso produce dos conjuntos cromosómicos equivalentes en cuanto a la información genética nuclear, aunque pueden existir diferencias derivadas de mutaciones previas, variaciones epigenéticas u otros acontecimientos que no necesariamente alteran el número de cromosomas. La precisión de la anafase depende de que la cohesión se elimine en el momento adecuado y de que las conexiones entre los cinetocoros y los microtúbulos puedan conducir los cromosomas hacia sus destinos respectivos.
El movimiento de los cromosomas durante la anafase se produce mediante mecanismos mecánicos complementarios. En la anafase A, los cromosomas se desplazan hacia los polos principalmente mediante cambios en los microtúbulos asociados a los cinetocoros, aunque la contribución relativa de la despolimerización en los extremos de los microtúbulos y de otros procesos depende del sistema celular estudiado. En la anafase B, los polos del huso se separan entre sí, lo que incrementa la distancia entre los dos conjuntos cromosómicos. Este alargamiento puede implicar el deslizamiento de microtúbulos interpolales, la actividad de proteínas motoras y fuerzas generadas por microtúbulos astrales que interactúan con estructuras celulares periféricas. Ambos procesos contribuyen a establecer una separación espacial suficiente entre los conjuntos cromosómicos antes de la formación de los dos núcleos hijos. Por consiguiente, la segregación cromosómica no depende de una única fuerza que arrastre pasivamente el material genético, sino de una combinación de dinámicas de los microtúbulos, actividades motoras y reorganizaciones mecánicas del huso mitótico.
Después de la segregación, la célula debe completar la reorganización de su material genético y separar físicamente su contenido citoplasmático. Durante la telofase, los cromosomas llegan a regiones opuestas de la célula, comienzan a descondensarse y se restablecen progresivamente las envolturas nucleares alrededor de los conjuntos cromosómicos. La citocinesis, por su parte, divide el citoplasma y permite que se formen dos células hijas físicamente independientes. En muchas células animales, este proceso depende de un anillo contráctil compuesto principalmente por actina y miosina, que genera un surco de segmentación y estrecha progresivamente la región central de la célula. En las células vegetales, la presencia de una pared celular rígida requiere un mecanismo diferente, basado en la formación de una placa celular que dará origen a la nueva separación entre las células hijas. Aunque la segregación cromosómica y la citocinesis son procesos distintos, su coordinación es indispensable: distribuir correctamente los cromosomas no basta si la división física del citoplasma ocurre de forma defectuosa, y una citocinesis normal tampoco puede compensar necesariamente una distribución cromosómica incorrecta.
La importancia de este mecanismo se comprende mejor al considerar las consecuencias de sus posibles fallos. Cuando un cromosoma completo no se distribuye correctamente, una célula hija puede recibir una copia adicional mientras la otra pierde la copia correspondiente. Esta alteración del número de cromosomas se denomina aneuploidía y debe distinguirse de los cambios que afectan a juegos cromosómicos completos. La aneuploidía puede modificar la dosis de numerosos genes y alterar el equilibrio de las proteínas que participan en complejos moleculares, redes metabólicas y mecanismos reguladores. Como consecuencia, puede afectar a la proliferación, la viabilidad, la respuesta al estrés y la estabilidad genética de las células. Sin embargo, sus efectos no son idénticos en todos los organismos ni en todos los tipos celulares: algunas células toleran determinadas alteraciones cromosómicas, mientras que otras experimentan consecuencias graves. En el contexto del cáncer, los errores de segregación y la inestabilidad cromosómica pueden contribuir a la diversidad genética de las poblaciones celulares y favorecer la aparición de subpoblaciones con características distintas, aunque la relación entre estas alteraciones y la progresión tumoral depende del contexto biológico y no debe interpretarse como una consecuencia inevitable de cualquier error mitótico.
Los errores de segregación también pueden originar micronúcleos, estructuras que contienen cromosomas completos o fragmentos cromosómicos que no quedan incorporados adecuadamente al núcleo principal después de la división. El material genético encerrado en estos compartimentos puede sufrir alteraciones estructurales y experimentar una regulación diferente de la del genoma nuclear principal. En determinadas circunstancias, los micronúcleos se asocian con roturas cromosómicas, reordenamientos genómicos y procesos de reorganización compleja del material genético. Estas consecuencias muestran que la relevancia de la segregación cromosómica no se limita a conservar el número de cromosomas, sino que también incluye proteger la integridad estructural del genoma. No obstante, no todos los micronúcleos evolucionan del mismo modo ni todas las células que los contienen desarrollan alteraciones genéticas adicionales; el resultado depende de la naturaleza del material atrapado, de las condiciones celulares y de los mecanismos de reparación y supervivencia que permanezcan activos.
En términos cuantitativos, el principio de la segregación puede ilustrarse mediante una célula humana somática normal, que antes de replicar su ácido desoxirribonucleico contiene 46 cromosomas nucleares. Después de la replicación, la célula mantiene 46 cromosomas, pero cada uno está compuesto por dos cromátidas hermanas, por lo que existen 92 cromátidas en total. Durante la anafase, las 92 cromátidas se separan y pasan a constituir 92 cromosomas individuales distribuidos entre los dos polos. Si la segregación se desarrolla correctamente, cada conjunto recibe 46 cromosomas y, después de completarse la división celular, cada célula hija conserva la dotación cromosómica característica de una célula somática humana diploide. Esta descripción supone que se trata de una célula con un complemento cromosómico normal, que no presenta alteraciones numéricas previas y que no ocurren errores durante la mitosis. La distinción entre el número de cromosomas y el número de cromátidas resulta crucial para interpretar estos datos, porque el número de cromosomas se determina convencionalmente por el número de unidades cromosómicas individuales y no por la cantidad de moléculas de ácido desoxirribonucleico presentes en la célula.
La segregación cromosómica es el proceso mediante el cual la célula distribuye ordenadamente los cromosomas duplicados entre las células hijas. Su precisión depende de una secuencia integrada de acontecimientos: la replicación del ácido desoxirribonucleico, la cohesión de las cromátidas hermanas, la condensación y organización de los cromosomas, el ensamblaje del huso mitótico, la unión de los cinetocoros a los microtúbulos, la corrección de las conexiones inadecuadas, la vigilancia ejercida por el punto de control mitótico, la activación del complejo promotor de la anafase y la separación coordinada de las cromátidas. La telofase y la citocinesis completan posteriormente la formación de las células hijas. La razón fundamental de que exista una maquinaria tan elaborada es que la distribución del genoma debe realizarse de forma coordinada, reproducible y compatible con la continuidad de la vida celular. Por ello, la segregación cromosómica no constituye un acontecimiento aislado de la mitosis, sino el resultado de la cooperación entre mecanismos estructurales, bioquímicos y mecánicos que protegen la transmisión de la información genética de una generación celular a la siguiente.

FUENTE Y BIBLIOGRAFÍA RECOMENDADA:
1. Nasmyth, K., & Haering, C. H. (2009). Cohesin: Its roles and mechanisms. Annual Review of Genetics, 43, 525–558. https://doi.org/10.1146/annurev-genet-102108-134233
2. Cleveland, D. W., Mao, Y., & Sullivan, K. F. (2003). Centromeres and kinetochores: From epigenetics to mitotic checkpoint signaling. Cell, 112(4), 407–421. https://doi.org/10.1016/S0092-8674(03)00115-6
3. McIntosh, J. R. (2016). Mitosis. Cold Spring Harbor Perspectives in Biology, 8(9), Article a023218. https://doi.org/10.1101/cshperspect.a023218
4. McIntosh, J. R. (2017). Assessing the contributions of motor enzymes and microtubule dynamics to mitotic chromosome motions. Annual Review of Cell and Developmental Biology, 33, 1–22. https://doi.org/10.1146/annurev-cellbio-100616-060827
5. Lampson, M. A., & Cheeseman, I. M. (2011). Sensing centromere tension: Aurora B and the regulation of kinetochore function. Trends in Cell Biology, 21(3), 133–140. https://doi.org/10.1016/j.tcb.2010.10.007
6. Lischetti, T., & Nilsson, J. (2015). Regulation of mitotic progression by the spindle assembly checkpoint. Molecular and Cellular Oncology, 2(1), Article e970484. https://doi.org/10.4161/23723548.2014.970484
7. Pihan, G. A. (2013). Centrosome dysfunction contributes to chromosome instability, chromoanagenesis, and genome reprograming in cancer. Frontiers in Oncology, 3, Article 277. https://doi.org/10.3389/fonc.2013.00277