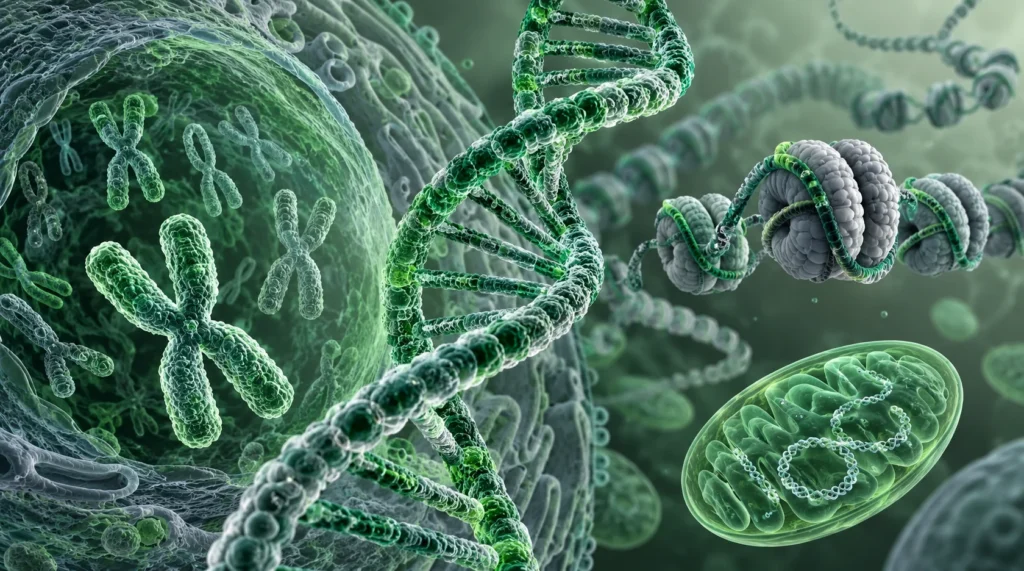

El genoma humano constituye una estructura molecular extraordinariamente compleja cuya organización permite almacenar, conservar, replicar y utilizar la información genética necesaria para el desarrollo y funcionamiento del organismo. En términos generales, dicha información se encuentra distribuida entre el genoma nuclear y el genoma mitocondrial. El primero está organizado en cromosomas lineales localizados en el núcleo celular, mientras que el segundo corresponde a moléculas circulares de DNA localizadas en las mitocondrias. Esta distribución no representa una simple duplicación de la información genética, sino el resultado de una organización celular en la que la mayor parte de la información hereditaria se encuentra en el núcleo y una fracción mucho menor permanece en las mitocondrias. El genoma nuclear humano haploide contiene aproximadamente 3.2 × 10^9 pares de bases y está distribuido en 24 tipos cromosómicos diferentes: 22 autosomas y los cromosomas sexuales X y Y. En una célula somática diploide existen normalmente 46 cromosomas, debido a que están presentes dos copias de cada autosoma y dos cromosomas sexuales.
La característica fundamental de los cromosomas humanos es que cada uno contiene una molécula de DNA de doble cadena extremadamente larga. Por esta razón, cuando una célula somática se encuentra en una etapa anterior a la duplicación de su DNA, sus 46 cromosomas corresponden a 46 moléculas cromosómicas de DNA. Esta afirmación debe distinguirse del número de moléculas de DNA que existen después de la replicación. Durante la fase de síntesis del ciclo celular, cada molécula cromosómica se replica y produce dos moléculas de DNA prácticamente idénticas que permanecen asociadas como cromátidas hermanas. Por consiguiente, después de la replicación una célula continúa considerándose 2n = 46 desde el punto de vista del número cromosómico, pero contiene 92 moléculas de DNA cromosómico. El número de cromosomas y el número de moléculas de DNA son, por tanto, magnitudes relacionadas pero no equivalentes. Esta distinción es fundamental para comprender correctamente la arquitectura molecular del genoma y los mecanismos mediante los cuales se transmite durante la división celular.
La cifra de 46 cromosomas tampoco significa que existan 46 tipos distintos de cromosomas humanos. En realidad, el complemento humano comprende 24 tipos cromosómicos: los cromosomas numerados del 1 al 22 y los cromosomas X e Y. Una célula somática con cariotipo 46,XX posee dos copias de cada autosoma y dos copias del cromosoma X, mientras que una célula con cariotipo 46,XY posee dos copias de cada autosoma y una copia del cromosoma X y otra del cromosoma Y. Los dos cromosomas homólogos de cada par contienen, en términos generales, los mismos conjuntos de genes situados en posiciones correspondientes, pero pueden diferir en su secuencia debido a las variantes genéticas heredadas. El cromosoma X y el cromosoma Y, en cambio, presentan diferencias profundas en tamaño, composición y contenido genético. Esta organización explica por qué el genoma humano diploide contiene aproximadamente el doble de DNA que el genoma haploide.
Cuando se afirma que el genoma nuclear humano contiene más de 6.000 millones de pares de bases, se está haciendo referencia aproximadamente al contenido de DNA de una célula somática diploide. El genoma haploide contiene alrededor de 3.2 × 10^9 pares de bases, por lo que la presencia de dos complementos cromosómicos produce un contenido nuclear cercano a 6.4 × 10^9 pares de bases. La expresión «pares de bases» es más precisa que «pares de nucleótidos» para describir esta cantidad, porque el DNA es una molécula de doble cadena en la que las bases nitrogenadas de una cadena se aparean de manera complementaria con las bases de la otra. La adenina se aparea con la timina y la guanina con la citosina. Por ello, una posición determinada del genoma se representa mediante un par de bases, aunque cada posición esté constituida físicamente por dos nucleótidos, uno en cada cadena.
La enorme cantidad de DNA contenida en los cromosomas plantea un problema físico considerable. Si las moléculas cromosómicas humanas se extendieran completamente, su longitud superaría ampliamente las dimensiones del núcleo celular. El DNA debe, por ello, compactarse mediante su asociación con proteínas. Las histonas constituyen los principales componentes proteicos implicados en esta organización y permiten formar nucleosomas, en los cuales segmentos de DNA se enrollan alrededor de complejos de histonas. La sucesión y organización de los nucleosomas produce la cromatina, que posteriormente adquiere niveles superiores de organización. Esta arquitectura no solamente permite introducir una cantidad enorme de DNA dentro de un espacio microscópico, sino que participa activamente en la regulación de la actividad genética, debido a que determina en qué medida diferentes regiones del DNA pueden ser reconocidas por proteínas reguladoras y por la maquinaria responsable de la transcripción.
Los cromosomas también contienen regiones especializadas indispensables para su estabilidad y transmisión. Los telómeros se encuentran en los extremos de los cromosomas lineales y forman estructuras especializadas que protegen los extremos del DNA cromosómico. Los centrómeros constituyen regiones esenciales para la segregación correcta de los cromosomas durante la división celular y presentan una abundancia considerable de DNA repetitivo. Precisamente estas regiones estuvieron entre las más difíciles de secuenciar durante las primeras etapas del proyecto del genoma humano. Las tecnologías de secuenciación utilizadas inicialmente no permitían resolver adecuadamente muchas regiones altamente repetitivas, especialmente los centrómeros, las regiones pericentroméricas, determinadas duplicaciones segmentarias y otras estructuras repetitivas. Por esta razón, las primeras referencias del genoma humano no constituían una representación absolutamente completa de todos los cromosomas.
El desarrollo de tecnologías de secuenciación de lecturas largas permitió superar una parte considerable de estas limitaciones. El proyecto Telomere-to-Telomere produjo en 2022 una secuencia humana prácticamente completa de extremo a extremo, incorporando regiones que anteriormente no estaban representadas adecuadamente en las referencias genómicas. Este avance demostró que una proporción importante de las regiones anteriormente ausentes correspondía a DNA altamente repetitivo y estructuralmente complejo. La nueva referencia también permitió estudiar con mayor precisión la arquitectura de los centrómeros, las duplicaciones segmentarias y otras regiones que habían sido difíciles de ensamblar. Por ello, la descripción contemporánea del genoma humano debe reconocer que la referencia genómica ha evolucionado desde una representación inicialmente incompleta hacia recursos cada vez más completos y capaces de representar regiones genómicas complejas.
Además, la secuencia de referencia no debe confundirse con el genoma exacto de un individuo humano concreto. Los seres humanos comparten la gran mayoría de su secuencia de DNA, pero cada individuo posee numerosas variantes genéticas. Estas variantes incluyen cambios de un solo nucleótido, inserciones, deleciones, duplicaciones y otras variaciones estructurales. Algunas modificaciones afectan regiones codificantes, mientras que otras se localizan en regiones reguladoras o en segmentos que presentan funciones estructurales. Por esta razón, una referencia lineal única no puede representar toda la diversidad genética humana. El proyecto Human Pangenome Reference Consortium se desarrolló precisamente para mejorar esta representación mediante múltiples genomas humanos de alta calidad, permitiendo describir una diversidad de secuencias que una referencia individual o una referencia compuesta no puede representar completamente.
La presencia de 46 cromosomas explica solamente la organización cromosómica del genoma nuclear y no agota la información genética de una célula humana. Existe además el genoma mitocondrial, localizado en las mitocondrias. A diferencia de los cromosomas nucleares, el DNA mitocondrial humano es una molécula circular de aproximadamente 16.569 pares de bases. Es, por tanto, extraordinariamente pequeño en comparación con el genoma nuclear. Sin embargo, su reducido tamaño no significa que sea irrelevante. El genoma mitocondrial contiene 37 genes, de los cuales 13 codifican proteínas, 22 codifican RNA de transferencia y 2 codifican RNA ribosómico. Los productos de los genes mitocondriales participan fundamentalmente en la función de la cadena respiratoria y en la expresión de la propia información genética mitocondrial.
Una diferencia importante es que una célula humana no contiene una única molécula de DNA mitocondrial. Cada célula puede contener múltiples mitocondrias y cada mitocondria puede contener varias copias de su genoma. En consecuencia, el número de moléculas de DNA mitocondrial puede alcanzar valores muy superiores al número de moléculas cromosómicas nucleares. Esta multiplicidad también varía entre tipos celulares y estados fisiológicos. Por esta razón, no sería correcto describir el genoma humano simplemente como 46 moléculas nucleares más una única molécula mitocondrial. Una descripción más rigurosa establece que una célula somática posee 46 moléculas cromosómicas de DNA antes de la replicación, además de numerosas copias de DNA mitocondrial.
La coexistencia de un genoma nuclear y un genoma mitocondrial tiene un origen evolutivo. Las mitocondrias derivan de un antiguo proceso de endosimbiosis mediante el cual una célula ancestral incorporó un organismo relacionado con las bacterias. Durante la evolución posterior, una gran cantidad de genes que originalmente pertenecían al organismo endosimbionte fueron transferidos al núcleo o se perdieron. El genoma mitocondrial humano actual constituye, por tanto, una versión altamente reducida del genoma del organismo ancestral que dio origen a las mitocondrias. Esta transferencia explica por qué numerosas proteínas indispensables para el funcionamiento mitocondrial están codificadas actualmente por genes nucleares y son posteriormente transportadas hacia las mitocondrias.
La importancia funcional del DNA humano tampoco puede reducirse a la presencia de genes que codifican proteínas. El genoma contiene genes codificantes, genes que producen diversos tipos de RNA y una gran cantidad de regiones reguladoras. Entre estas últimas se encuentran promotores, potenciadores y otros elementos capaces de modificar la actividad transcripcional. La secuencia de estos elementos contiene información que puede ser reconocida por proteínas reguladoras específicas. La investigación experimental ha demostrado que determinadas características de la secuencia del DNA contribuyen directamente a establecer la actividad de elementos reguladores humanos, incluyendo sitios capaces de reconocer factores de transcripción. Por consiguiente, una parte importante de la información funcional del genoma se encuentra fuera de las regiones que codifican proteínas.
La expresión de un gen constituye, por tanto, un proceso mucho más complejo que la simple lectura de su secuencia. La información contenida en el DNA determina qué secuencias pueden ser reconocidas por factores de transcripción y otros componentes reguladores, pero la actividad efectiva de un gen depende de si esos factores están presentes, de la accesibilidad de la cromatina, de la organización tridimensional del DNA y de numerosos mecanismos epigenéticos. Dos células del mismo organismo pueden contener prácticamente el mismo conjunto de genes y, sin embargo, expresar grupos de genes profundamente diferentes. Esta propiedad es fundamental para explicar cómo pueden originarse células con funciones especializadas a partir de un mismo genoma.
La cromatina desempeña un papel central en este proceso. Una secuencia de DNA puede estar físicamente presente en una célula, pero su disponibilidad para la maquinaria transcripcional puede cambiar dependiendo de su organización cromatínica. La asociación del DNA con nucleosomas, las modificaciones de las histonas, la metilación del DNA y las interacciones entre regiones distantes del genoma pueden modificar la probabilidad de que determinados genes sean transcritos. En consecuencia, la información genética debe entenderse como una combinación entre la secuencia de DNA y un sistema regulador que determina cómo puede utilizarse dicha secuencia en un determinado contexto celular.
La organización tridimensional del genoma añade otra dimensión a este fenómeno. Los cromosomas no se encuentran distribuidos aleatoriamente dentro del núcleo, sino que adoptan una organización espacial que permite determinados contactos entre regiones genómicas. Un potenciador puede encontrarse físicamente alejado de un gen cuando la molécula se representa como una secuencia lineal, pero el plegamiento de la cromatina puede aproximar espacialmente ambas regiones. Esta arquitectura permite que elementos reguladores actúen sobre genes que no necesariamente se encuentran inmediatamente adyacentes en la secuencia lineal. La regulación genética debe entenderse, por tanto, tanto en términos de distancia lineal como de proximidad espacial dentro del núcleo.
Esta organización explica por qué no es adecuado afirmar, en sentido estricto, que todos los determinantes de la expresión génica quedan «especificados» únicamente por la secuencia lineal del DNA. La secuencia constituye el soporte informacional fundamental y contiene las instrucciones necesarias para codificar RNA y proteínas, además de numerosas señales reguladoras. Sin embargo, la expresión depende de un sistema molecular que incluye factores de transcripción, proteínas remodeladoras de cromatina, modificaciones epigenéticas, organización nuclear y mecanismos que actúan después de la transcripción. Por ello, la expresión de un gen representa una propiedad emergente de la interacción entre la secuencia genómica y el estado molecular de la célula.
La relación entre estructura cromosómica y expresión genética también explica una característica fundamental de los organismos multicelulares: la diferenciación celular. Una neurona, una célula hepática, una célula muscular y una célula epitelial poseen, en términos generales, el mismo genoma nuclear, pero expresan diferentes conjuntos de genes. La diferencia funcional entre estas células no se debe principalmente a que cada una posea un conjunto distinto de cromosomas, sino a que diferentes regiones del mismo genoma se encuentran activas o reprimidas según el programa molecular específico de cada tipo celular. De esta manera, el organismo utiliza un único repertorio genético para producir una enorme diversidad de estados celulares.
La arquitectura cromosómica también explica por qué el concepto de genoma debe diferenciarse del concepto de conjunto de genes. El genoma incluye no solamente las regiones que producen proteínas, sino también genes que codifican RNA no codificante, secuencias reguladoras, regiones repetitivas, regiones estructurales y grandes segmentos cuya función continúa siendo objeto de investigación. La secuencia de DNA constituye una estructura informacional continua, pero sus diferentes regiones desempeñan funciones muy distintas. Algunas especifican productos moleculares concretos; otras regulan la actividad de genes; otras contribuyen a la estructura y estabilidad cromosómica; y algunas pueden influir en la organización tridimensional del genoma.
En este sentido, la afirmación de que el genoma nuclear humano está formado por 46 moléculas lineales de DNA es una descripción válida bajo una condición concreta: debe tratarse de una célula somática con complemento diploide y debe considerarse el estado previo a la replicación del DNA. En cambio, la afirmación de que el genoma humano contiene más de 6.000 millones de pares de bases debe entenderse como una aproximación al contenido diploide de DNA nuclear. El genoma haploide contiene aproximadamente 3.2 × 10^9 pares de bases, mientras que el complemento diploide contiene aproximadamente el doble. Además, la longitud exacta y la secuencia varían entre individuos, y las referencias genómicas modernas han demostrado que las primeras versiones del genoma humano no representaban completamente determinadas regiones repetitivas y estructuralmente complejas.
El genoma humano puede entenderse como un sistema molecular constituido por una arquitectura nuclear de 46 cromosomas en las células somáticas diploides y por múltiples copias de un pequeño genoma mitocondrial circular. Los cromosomas nucleares contienen moléculas lineales de DNA cuya longitud total alcanza aproximadamente 6.4 × 10^9 pares de bases por célula somática antes de considerar la replicación y las variaciones individuales. El DNA mitocondrial añade una cantidad mucho menor de secuencia, pero se encuentra en numerosas copias y conserva genes esenciales para funciones mitocondriales. Sobre esta arquitectura física se establece una organización reguladora extraordinariamente compleja, en la que las secuencias codificantes y reguladoras interactúan con proteínas, cromatina y estructuras tridimensionales para determinar qué información genética es utilizada en cada célula.
El significado biológico del genoma humano no reside exclusivamente en la cantidad de DNA almacenada ni en el número de cromosomas. Su importancia deriva de la manera en que esa enorme cantidad de información se organiza, se replica, se mantiene y se interpreta. Los 46 cromosomas constituyen unidades físicas de almacenamiento y transmisión de información genética; las secuencias contenidas en ellos proporcionan las instrucciones moleculares; la cromatina regula su accesibilidad; los elementos reguladores controlan la actividad de genes; la organización tridimensional aproxima regiones funcionalmente relacionadas; y el genoma mitocondrial conserva una fracción especializada de información genética. La comprensión moderna del genoma humano exige, por tanto, considerar simultáneamente su dimensión secuencial, cromosómica, epigenética, espacial y funcional. La descripción del genoma como «46 moléculas lineales de DNA» constituye el punto de partida estructural, pero solamente adquiere su verdadero significado biológico cuando se comprende que esas moléculas forman un sistema dinámico capaz de producir programas de expresión diferentes en prácticamente todos los tipos celulares del organismo.

FUENTE Y BIBLIOGRAFÍA RECOMENDADA:
- International Human Genome Sequencing Consortium. (2001). Initial sequencing and analysis of the human genome. Nature, 409, 860–921. https://doi.org/10.1038/35057062
- Lander, E. S., Linton, L. M., Birren, B., Nusbaum, C., Zody, M. C., Baldwin, J., Devon, K., Dewar, K., Doyle, M., FitzHugh, W., Funke, R., Gage, D., Harris, K., Heaford, A., Howland, J., Kann, L., Lehoczky, J., Levine, R., McEwan, P., … International Human Genome Sequencing Consortium. (2001). Initial sequencing and analysis of the human genome. Nature, 409, 860–921. https://doi.org/10.1038/35057062
- Mao, Y., & Zhang, G. (2022). A complete, telomere-to-telomere human genome sequence presents new opportunities for evolutionary genomics. Nature Methods, 19, 635–638. https://doi.org/10.1038/s41592-022-01512-4
- Miga, K. H., Koren, S., Rhie, A., Vollger, M. R., Gershman, A., Bzikadze, A., Brooks, S., Howe, E., Porubsky, D., Logsdon, G. A., Schneider, V. A., Potapova, T., Wood, J., Chow, W., Armstrong, J., Altemose, N., Antonacci, F., Bzikadze, A., Chuang, N. T., … Eichler, E. E. (2020). Telomere-to-telomere assembly of a complete human X chromosome. Nature, 585, 79–84. https://doi.org/10.1038/s41586-020-2547-7
- Nurk, S., Koren, S., Rhie, A., Rautiainen, M., Bzikadze, A. V., Mikheenko, A., Vollger, M. R., Altemose, N., Uralsky, L., Gershman, A., Aganezov, S., Hoyt, S. J., Diekhans, M., Logsdon, G. A., Alonge, M., Eizenga, J. M., Miga, K. H., Phillippy, A. M., & Eichler, E. E. (2022). The complete sequence of a human genome. Science, 376(6588), 44–53. https://doi.org/10.1126/science.abj6987
- Sahu, B., Hartonen, T., Pihlajamaa, P., Wei, B., Dave, K., Zhu, F., Kaasinen, E., Lidschreiber, K., Lidschreiber, M., Daub, C. O., & Taipale, J. (2022). Sequence determinants of human gene regulatory elements. Nature Genetics, 54, 283–294. https://doi.org/10.1038/s41588-021-01009-4
- Telomere-to-Telomere Consortium. (2022). The complete sequence of a human genome. Science, 376(6588), 44–53. https://doi.org/10.1126/science.abj6987
- Wang, T., Korbel, J. O., & others. (2022). The Human Pangenome Project: a global resource to map genomic diversity. Nature, 604, 437–446. https://doi.org/10.1038/s41586-022-04601-8