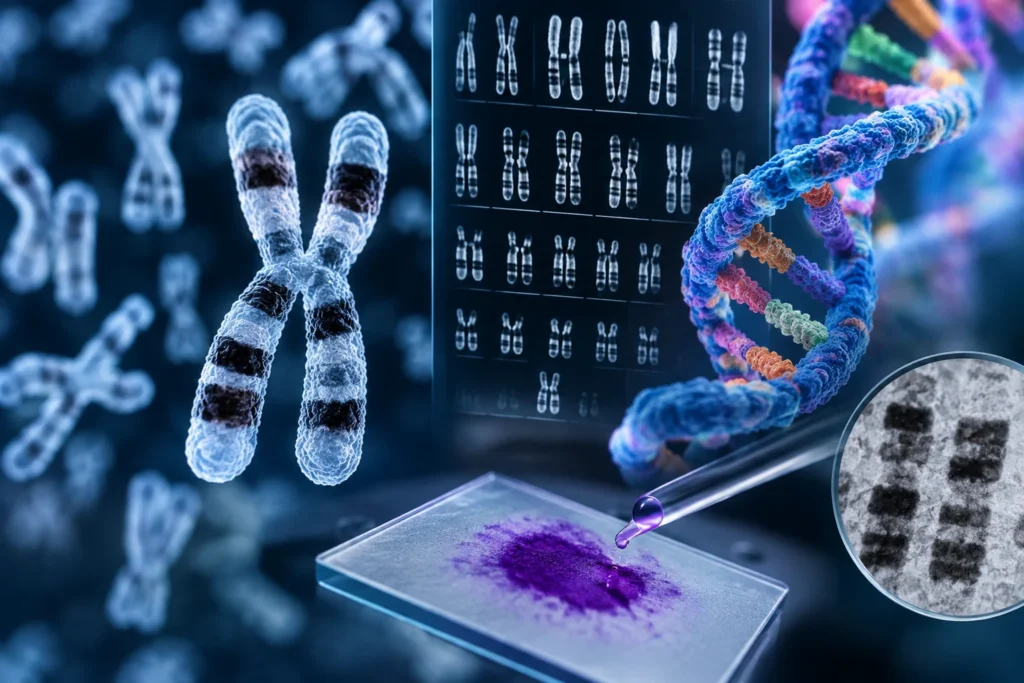

El bandeo G es una técnica citogenética que permite identificar los cromosomas mediante un patrón reproducible de bandas claras y oscuras, cuya distribución depende de las propiedades estructurales y químicas de la cromatina, de la composición de la secuencia de ácido desoxirribonucleico y de la organización de las proteínas asociadas a ella. Este patrón es característico de cada cromosoma y de cada uno de sus segmentos, por lo que permite reconocer los pares de cromosomas homólogos, establecer su correspondencia estructural y detectar alteraciones cromosómicas, como deleciones, duplicaciones, translocaciones e inversiones, siempre que su tamaño y sus características sean suficientes para distinguirlas mediante microscopía. La utilidad de esta técnica radica en que las bandas no aparecen de manera aleatoria, sino que reflejan diferencias regionales en las propiedades de la cromatina y en la composición del genoma.
El procedimiento convencional consiste en tratar los cromosomas, generalmente durante la metafase de la división celular, con una solución de tripsina y teñirlos posteriormente con Giemsa. La tripsina es una enzima proteolítica que modifica parcialmente las proteínas cromosómicas, mientras que el colorante Giemsa permite visualizar las diferencias resultantes en la tinción de las distintas regiones. La intensidad de las bandas depende de la interacción entre el tratamiento enzimático, la organización de la cromatina, las propiedades del ácido desoxirribonucleico y las condiciones experimentales. Por ello, aunque el patrón obtenido es reproducible bajo condiciones controladas, no debe interpretarse como una representación directa de la secuencia de nucleótidos ni como una medición exclusiva de la cantidad de guanina, citosina, adenina o timina presente en cada región cromosómica.
Las bandas oscuras del bandeo G suelen corresponder a regiones relativamente enriquecidas en adenina y timina, con una menor proporción de pares de bases formados por guanina y citosina. Estas regiones tienden a presentar una menor densidad de genes, una replicación relativamente tardía durante la fase de síntesis del ciclo celular y una mayor representación de determinadas secuencias repetitivas. Por el contrario, las bandas claras suelen ser relativamente más ricas en guanina y citosina, presentar una mayor densidad génica y replicarse antes durante la fase de síntesis. Estas relaciones son tendencias estadísticas observadas a escala de regiones cromosómicas, no reglas absolutas: existen excepciones y diferencias entre cromosomas, segmentos y tipos celulares. En consecuencia, la intensidad de una banda no permite deducir por sí sola la composición exacta de bases, el número de genes ni la actividad transcripcional de una región.
La distribución de los elementos de ácido desoxirribonucleico repetitivos también contribuye a explicar las diferencias entre las bandas cromosómicas. Estas secuencias pueden aparecer dispersas por el genoma o agrupadas en regiones específicas, y su abundancia relativa varía entre los distintos dominios cromosómicos. Por ejemplo, las secuencias repetitivas de la familia Alu se encuentran enriquecidas en numerosas regiones de bandeo R, generalmente ricas en guanina y citosina, mientras que las bandas G presentan una organización diferente de las secuencias repetitivas. Esta distribución contribuye a distinguir dominios genómicos con propiedades distintas, aunque no permite afirmar que todas las bandas oscuras estén enriquecidas en una misma clase de secuencias repetitivas. La relación entre el bandeo y el ácido desoxirribonucleico repetitivo es, por tanto, regional y depende de la familia de secuencias considerada.
La razón fundamental por la que estas características se correlacionan es que la composición de bases, la densidad génica, la distribución de las secuencias repetitivas, el momento de replicación y el empaquetamiento de la cromatina no son propiedades independientes dentro del genoma. En conjunto, contribuyen a la organización de los cromosomas en dominios con características moleculares y funcionales diferenciadas. Las bandas G y R representan patrones de tinción complementarios que reflejan, de manera aproximada, esta heterogeneidad longitudinal del material cromosómico. Sin embargo, la tinción no identifica directamente cada secuencia ni establece por sí misma una relación causal entre el contenido de adenina y timina y la aparición de una banda oscura. La composición de bases constituye uno de los factores asociados al patrón, mientras que la estructura de la cromatina y las condiciones de tinción también intervienen en su manifestación observable.
Cuando se afirma que cada par de cromosomas presenta un patrón característico de bandas claras y oscuras, se hace referencia a una distribución reproducible de regiones con propiedades citogenéticas diferentes, no a una correspondencia exacta entre cada banda y una secuencia específica de ácido desoxirribonucleico. Esta distinción es importante porque el bandeo G permite identificar cromosomas y reconocer numerosas alteraciones estructurales, pero su resolución es inferior a la de las técnicas moleculares que analizan directamente la secuencia o el número de copias del material genético. La interpretación más precisa es que el patrón de bandas constituye una representación citológica de la organización regional del genoma y que su correlación con la composición de bases y las secuencias repetitivas es aproximada, estadística y dependiente del contexto cromosómico.

FUENTE Y BIBLIOGRAFÍA RECOMENDADA:
- Craig, J. M., & Bickmore, W. A. (1993). Chromosome bands—flavours to savour. BioEssays, 15(5), 349–354. https://doi.org/10.1002/bies.950150510
- Craig, J. M., & Bickmore, W. A. (1994). The distribution of CpG islands in mammalian chromosomes. Nature Genetics, 7, 376–382. https://doi.org/10.1038/ng0794-376
- Holmquist, G. P. (1989). Evolution of chromosome bands: Molecular ecology of noncoding DNA. Journal of Molecular Evolution, 28(6), 469–486. https://doi.org/10.1007/BF02602928
- Holmquist, G. P. (1992). Chromosome bands, their chromatin flavors, and their functional features. American Journal of Human Genetics, 51(1), 17–37. https://pmc.ncbi.nlm.nih.gov/articles/PMC1682890/
- McGowan-Jordan, J., Hastings, R. J., & Moore, S. (Eds.). (2020). ISCN 2020: An International System for Human Cytogenomic Nomenclature. Karger. https://doi.org/10.1159/000508221
- Seabright, M. (1971). A rapid banding technique for human chromosomes. The Lancet, 298(7731), 971–972. https://doi.org/10.1016/S0140-6736(71)90287-X