
Durante el ciclo celular, la cromatina experimenta cambios profundos en su organización espacial. En la interfase, el DNA permanece asociado con nucleosomas y con numerosas proteínas de la cromatina, formando una estructura compacta pero dinámicamente organizada. Durante la mitosis, la cromatina adquiere un estado de condensación mucho mayor que permite la formación de cromosomas individualizados y su posterior segregación. La compactación del genoma, por tanto, no corresponde a una única estructura permanente, sino a diferentes estados de organización que dependen del contexto celular y de la función que debe desempeñar el DNA.
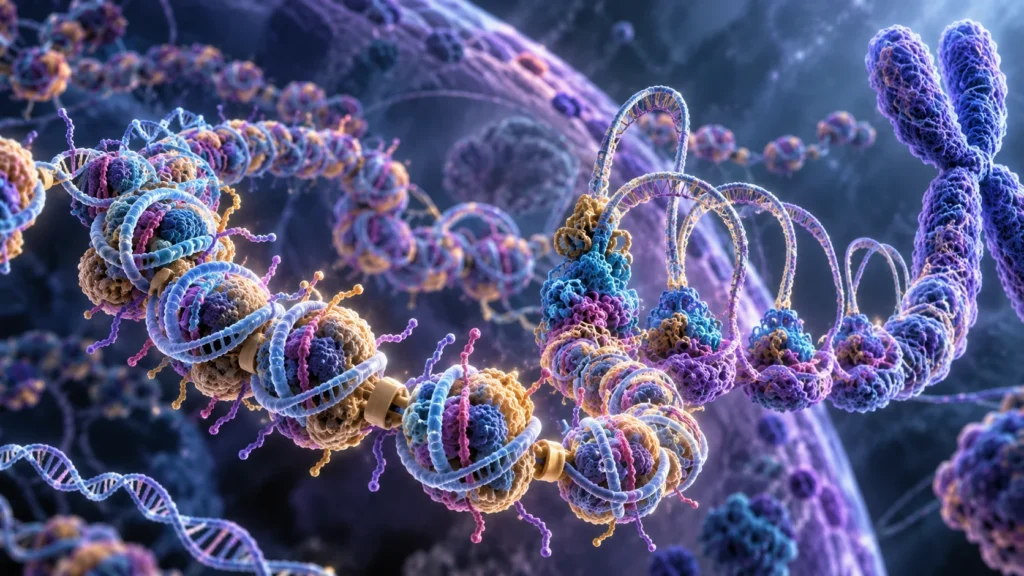
El DNA humano posee una longitud extraordinaria en relación con las dimensiones del núcleo. Para poder permanecer dentro de este compartimento, debe asociarse con proteínas y adoptar diferentes niveles de organización. El primer nivel está constituido por los nucleosomas, estructuras formadas por un octámero de histonas alrededor del cual se enrolla el DNA. Los nucleosomas se encuentran conectados mediante segmentos de DNA de enlace y constituyen la unidad repetitiva fundamental de la cromatina. Esta organización permite reducir considerablemente la extensión lineal del DNA y, al mismo tiempo, proporciona una estructura regulable sobre la que actúan proteínas responsables de la transcripción, replicación, reparación y organización tridimensional del genoma.
Las cadenas de nucleosomas pueden adquirir estados de mayor compactación. En determinadas condiciones experimentales, especialmente cuando están presentes histonas de enlace y concentraciones apropiadas de iones, los conjuntos de nucleosomas pueden organizarse en fibras con un diámetro aproximado de 30 nm. Estas estructuras representan formas compactas de organización de los nucleosomas y han sido reproducidas mediante sistemas de cromatina reconstituida y estudiadas mediante técnicas estructurales de alta resolución. La histona H1 desempeña un papel importante en este proceso porque se une al DNA de enlace y favorece las interacciones entre nucleosomas, aumentando la compactación de las cadenas nucleosómicas.
El término solenoide describe una disposición helicoidal en la que los nucleosomas se organizan alrededor de un eje central. El modelo clásico propuso una hélice de una entrada en la que los nucleosomas consecutivos se encuentran próximos entre sí y el DNA de enlace sigue una trayectoria curvada. Este modelo permitió explicar de manera sencilla cómo una cadena de nucleosomas podía reducir todavía más su extensión espacial. Sin embargo, la organización molecular de las fibras compactas puede presentar diferentes geometrías. Las estructuras estudiadas mediante técnicas de microscopía electrónica criogénica han demostrado que los nucleosomas pueden organizarse también mediante configuraciones helicoidales de dos entradas, en las cuales los nucleosomas se disponen en una trayectoria semejante a un zigzag. La arquitectura resultante depende de propiedades como la longitud del DNA de enlace, las interacciones entre las histonas y la presencia de histonas de enlace.
En la cromatina celular, la organización de 30 nm no constituye una estructura continua que se extienda de manera uniforme por todo el genoma. Los estudios realizados mediante microscopía electrónica criogénica, dispersión de rayos X, microscopía de superresolución y otras técnicas de análisis estructural han mostrado que, en la mayoría de las células examinadas, la cromatina presenta una organización irregular y heterogénea. Los nucleosomas pueden formar agrupaciones de diferentes tamaños y densidades, y estas agrupaciones pueden interactuar entre sí sin constituir necesariamente una fibra helicoidal regular y continua. Por esta razón, el modelo del solenoide no representa actualmente una descripción general de la arquitectura de la cromatina dentro de las células.
La organización de la cromatina debe entenderse actualmente como un sistema dinámico en el que las cadenas de nucleosomas adquieren diferentes grados de compactación y establecen interacciones espaciales a múltiples escalas. Los nucleosomas pueden formar agrupaciones locales, mientras que regiones cromosómicas más extensas pueden organizarse en dominios caracterizados por una frecuencia elevada de interacciones internas. Esta organización tridimensional permite que regiones del genoma separadas por grandes distancias en la secuencia lineal del DNA puedan aproximarse físicamente dentro del núcleo.
Las interacciones tridimensionales entre regiones cromosómicas constituyen un componente fundamental de la arquitectura del genoma. Los estudios realizados mediante técnicas de captura de conformación cromosómica han demostrado que los cromosomas contienen dominios de asociación topológica en los que las regiones internas presentan una frecuencia de contacto relativamente elevada. Dentro de estos dominios también pueden formarse bucles cromatínicos que aproximan regiones específicas del DNA. Esta organización permite establecer contactos funcionales entre elementos reguladores que se encuentran separados por grandes distancias en la secuencia lineal.
La formación de determinados bucles cromatínicos está relacionada con la actividad de complejos proteicos que reorganizan físicamente la cromatina. La cohesina puede desplazarse a lo largo de la cromatina y promover la aproximación progresiva de regiones situadas a distancia, mediante un proceso conocido como extrusión de bucles. La proteína CTCF puede actuar como elemento de detención o delimitación de determinados procesos de extrusión cuando se encuentra asociada con secuencias específicas y presenta la orientación adecuada. Estos mecanismos proporcionan una explicación molecular para la formación de numerosos contactos cromosómicos observados en los mapas tridimensionales del genoma.
La arquitectura tridimensional del genoma posee consecuencias directas para la regulación de la expresión génica. Un gen no funciona exclusivamente en función de su secuencia promotora, sino también de las interacciones que establece con otras regiones reguladoras. Los potenciadores, promotores y otros elementos reguladores pueden encontrarse separados por grandes distancias a lo largo de la molécula de DNA y, sin embargo, quedar próximos espacialmente debido al plegamiento de la cromatina. La organización tridimensional determina, por tanto, qué regiones del genoma pueden establecer contactos funcionales entre sí.
La accesibilidad del DNA también está determinada por la organización de los nucleosomas y por la interacción de la cromatina con proteínas especializadas. El posicionamiento de los nucleosomas puede dificultar o favorecer el acceso de factores de transcripción y otras proteínas reguladoras. Los complejos remodeladores de cromatina pueden desplazar, reorganizar o retirar nucleosomas, mientras que las modificaciones químicas de las histonas pueden modificar las propiedades de la cromatina y favorecer determinados estados estructurales. La regulación génica resulta así de la interacción entre la secuencia del DNA, la posición de los nucleosomas, las modificaciones de las histonas, las proteínas asociadas y la organización tridimensional del cromosoma.
La compactación tampoco es equivalente de manera absoluta a inactividad génica. Las regiones de cromatina presentan diferentes estados funcionales y estructurales, y la relación entre compactación y actividad depende del contexto celular. La cromatina puede reorganizarse localmente cuando un gen es activado o reprimido, permitiendo modificar la accesibilidad de determinadas secuencias y alterar las interacciones entre regiones reguladoras. La estructura cromatínica debe considerarse, por tanto, un sistema dinámico capaz de cambiar en respuesta a las necesidades funcionales de la célula.
La organización cromosómica también cambia durante la división celular. Durante la mitosis, los cromosomas adquieren una estructura altamente condensada que permite su segregación ordenada hacia las células hijas. En este proceso participan complejos de condensina, que organizan la cromatina mediante la formación y reorganización de bucles. La condensación mitótica no depende de la formación de una sucesión de fibras regulares de 30 nm que posteriormente se enrollarían unas sobre otras, sino de una organización dinámica de la cromatina en la que intervienen proteínas estructurales y mecanismos de extrusión de bucles.
La condensina y la cohesina pertenecen a una familia de complejos proteicos capaces de modificar la organización tridimensional de los cromosomas. La cohesina desempeña funciones esenciales en la organización de la cromatina durante la interfase y en la cohesión de las cromátidas hermanas, mientras que la condensina participa de manera fundamental en la organización y compactación de los cromosomas mitóticos. La actividad de estos complejos contribuye a transformar la cromatina en estructuras capaces de soportar las exigencias mecánicas asociadas con la segregación cromosómica.
Los estudios estructurales contemporáneos permiten describir la cromatina como un polímero biológico dinámico constituido por DNA, nucleosomas y numerosas proteínas asociadas. En lugar de una cadena que se enrolla de manera uniforme formando sucesivamente fibras cada vez más gruesas, el genoma adopta una organización heterogénea en la que coexisten regiones con diferentes grados de compactación, agrupaciones de nucleosomas, dominios cromosómicos y contactos de largo alcance. Esta organización puede modificarse localmente y también experimentar transformaciones globales durante el ciclo celular.
El concepto de fibra de 30 nm conserva importancia para comprender las propiedades físicas de la cromatina y continúa siendo relevante en sistemas experimentales en los que se pueden formar estructuras compactas de este tipo. Estudios estructurales recientes han demostrado que conjuntos definidos de nucleosomas pueden adoptar fibras compactas de aproximadamente 30 nm y han permitido determinar con gran resolución las interacciones entre nucleosomas y la participación de las histonas de enlace. Estas observaciones muestran que las configuraciones compactas de nucleosomas son estructuras moleculares reales que pueden formarse bajo determinadas condiciones, aunque no constituyen una arquitectura continua y universal de la cromatina celular.
La organización de la cromatina puede representarse actualmente de manera más precisa mediante una secuencia conceptual en la que el DNA se asocia con histonas para formar nucleosomas, los nucleosomas constituyen cadenas y agrupaciones dinámicas, estas estructuras establecen contactos tridimensionales y forman dominios cromosómicos, y los dominios se integran en territorios cromosómicos dentro del núcleo. Durante la división celular, estos componentes se reorganizan mediante mecanismos dependientes de proteínas arquitectónicas y complejos de condensación hasta generar cromosomas altamente compactados.
La función principal de esta organización consiste en resolver simultáneamente dos necesidades biológicas fundamentales: compactar una cantidad extraordinariamente grande de DNA dentro del núcleo y mantener la capacidad de utilizar selectivamente la información genética. La cromatina debe ser suficientemente compacta para organizar y proteger el genoma, pero suficientemente dinámica para permitir que las proteínas responsables de la transcripción, replicación, reparación y regulación génica accedan a las regiones necesarias. Esta propiedad explica por qué la arquitectura cromatínica no puede considerarse una estructura pasiva.
El concepto de solenoide debe entenderse actualmente como una forma específica de organización helicoidal que puede producirse en determinados conjuntos de nucleosomas y condiciones moleculares, pero no como la estructura general que organiza todo el genoma humano. La arquitectura cromatínica celular se caracteriza por una organización dinámica y heterogénea basada en nucleosomas, interacciones entre nucleosomas, dominios cromosómicos, bucles, proteínas arquitectónicas y complejos capaces de reorganizar activamente el DNA. Esta organización tridimensional permite que el genoma permanezca compactado dentro del núcleo y, simultáneamente, conserve la accesibilidad necesaria para desarrollar las funciones esenciales del material genético.

FUENTE Y BIBLIOGRAFÍA RECOMENDADA:
- Finch, J. T., & Klug, A. (1976). Solenoidal model for superstructure in chromatin. Proceedings of the National Academy of Sciences, 73(6), 1897–1901. https://doi.org/10.1073/pnas.73.6.1897
- Fraser, J., Williamson, I., Bickmore, W. A., & Dostie, J. (2015). An overview of genome organization and how we got there: From FISH to Hi-C. Microbiology and Molecular Biology Reviews, 79(3), 347–372. https://doi.org/10.1128/MMBR.00006-15
- Fudenberg, G., Imakaev, M., Lu, C., Goloborodko, A., Abdennur, N., & Mirny, L. A. (2016). Formation of chromosomal domains by loop extrusion. Cell Reports, 15(9), 2038–2049. https://doi.org/10.1016/j.celrep.2016.04.085
- Hansen, J. C. (2012). Human mitotic chromosome structure: What happened to the 30-nm fibre? The EMBO Journal, 31(7), 1621–1623. https://doi.org/10.1038/emboj.2012.66
- Luger, K., Mäder, A. W., Richmond, R. K., Sargent, D. F., & Richmond, T. J. (1997). Crystal structure of the nucleosome core particle at 2.8 Å resolution. Nature, 389, 251–260. https://doi.org/10.1038/38444
- Maeshima, K., Hihara, S., & Eltsov, M. (2010). Chromatin structure: Does the 30-nm fibre exist in vivo? Current Opinion in Cell Biology, 22(3), 291–297. https://doi.org/10.1016/j.ceb.2010.03.001
- Misteli, T. (2020). The self-organizing genome: Principles of genome architecture and function. Cell, 183(1), 28–45. https://doi.org/10.1016/j.cell.2020.09.014
- Naumova, N., Imakaev, M., Fudenberg, G., Zhan, Y., Lajoie, B. R., Mirny, L. A., & Dekker, J. (2013). Organization of the mitotic chromosome. Science, 342(6161), 948–953. https://doi.org/10.1126/science.1236083
- Ou, H. D., Phan, S., Deerinck, T. J., Thor, A., Ellisman, M. H., & O’Shea, C. C. (2017). ChromEMT: Visualizing 3D chromatin structure and compaction in interphase and mitotic cells. Science, 357(6349), eaag0025. https://doi.org/10.1126/science.aag0025
- Rao, S. S. P., Huntley, M. H., Durand, N. C., Stamenova, E. K., Bochkov, I. D., Robinson, J. T., Sanborn, A. L., Machol, I., Omer, A. D., Lander, E. S., & Aiden, E. L. (2014). A 3D map of the human genome at kilobase resolution reveals principles of chromatin looping. Cell, 159(7), 1665–1680. https://doi.org/10.1016/j.cell.2014.11.021
- Zhou, B. R., Bai, Y., Beck, D. A. C., & Bai, Y. (2024). Structural basis for linker histone H5–nucleosome binding and chromatin fiber compaction. Cell Research, 34, 661–670. https://doi.org/10.1038/s41422-024-01009-z
- Bilokapic, S., & Halic, M. (2024). Illuminating nucleosome interactions. Cell Research, 34, 671–672. https://doi.org/10.1038/s41422-024-01019-x